.
Condición fitosanitaria:
Candidatus Liberibacter asiaticus > Plaga Cuarentenaria Presente
Candidatus Liberibacter africanus > Plaga Cuarentenaria Ausente
Candidatus Liberibacter americanus > Plaga Cuarentenaria Ausente
.
Grupo de cultivos: Frutales (Cítricos)
Especie hospedante: Lima Tahiti (Citrus aurantifolia), limón (Citrus limonum), mandarina (Citrus nobilis), naranjo (Citrus sinensis), pomelo (Citrus paradisi), murraya (Murraya paniculata). Todas las variedades comerciales de cítricos son susceptibles al HLB.
Rango de hospedantes: específico, estrecho. El rango de hospedantes de Candidatus Liberibacter spp causantes de HLB se limita a los cítricos y sus parientes.
Epidemiología: es considerada una enfermedad poliética
Transmisión: Diaphorina citri («Psílido asiático de los cítricos»), de manera persistente (circulativa) y propagativa
Etiología: Bacteria Gram negativa. Considerada biotrófica. Limitada al floema. Fastidiosa (no cultivable).
Agente causal: Candidatus Liberibacter spp, candidatus name (nombre provisional para organismos bien caracterizados pero aún sin cultivar in vitro)
(Candidatus Liberibacter asiaticus, Candidatus Liberibacter africanus, Candidatus Liberibacter americanus)
Taxonomía: Bacteria > Pseudomonadota > Alphaproteobacteria > Hyphomicrobiales > Rhizobiaceae > Liberibacter
.
El patógeno causante del HLB es una bacteria de tipo Gram-negativa, exclusivamente localizada en los tubos del floema, no cultivable, denominada Candidatus Liberibacter ssp. El organismo procariota asociado a esta enfermedad recién fue descubierto en 1970.
.
Vector:
Diaphorina citri Kuwayama, 1907 («Psílido asiático de los cítricos»)
Taxonomía: Eukaryota > Opisthokonta > Metazoa > Eumetazoa > Bilateria > Protostomia > Ecdysozoa > Panarthropoda > Arthropoda > Mandibulata > Pancrustacea > Hexapoda > Insecta > Dicondylia > Pterygota > Neoptera > Paraneoptera > Hemiptera > Sternorrhyncha > Psylloidea > Liviidae > Diaphorina
.
.
f.
.
Antecedentes
El HLB es la enfermedad más destructiva de los cítricos en el mundo entero. Fue reportada por primera vez en el año 1919 en China, en donde se la denominó HuangLongBing (en chino, 黃龍病; pinyin, huánglóngbìng; literalmente, «enfermedad del Dragón amarillo» o «enfermedad del quemado del dragón»). De aquí proviene el acrónimo con el que se la conoce en la Argentina: el HLB. En inglés se la denominó «Greening» (Gottwald et al., 2007).
Actualmente, se encuentra presente en Asia, África, Oceanía, y en el Norte y Sur de países de América. En el continente americano, la primera detección y cita fue en el Estado de San Pablo, Brasil, en el año 2004. Al año siguiente fue reportada en Estados Unidos, y luego en Cuba, República Dominicana, Nicaragua, Honduras, Belize, México y Paraguay. El impacto devastador de la epidemia en México se relata en este video, y en Brasil se relata en este video.
En Florida, EE. UU. el 100% de las plantaciones de cítricos maduros son HLB positivos, lo que ha provocado una pérdida del 75% de la producción bruta de cítricos en comparación con la era previa al HLB (Milne et al., 2018). El impacto devastador de la epidemia en el estado de Florida se relata en este video.
Para la Argentina, el HLB es una amenaza cierta de consecuencias económicas potenciales muy importantes, debido a la cercanía de la frontera Argentina con la de Brasil (aprox. 200 Km. desde Puerto Iguazú). Por este motivo, el SENASA coordina el Programa Nacional de Prevención de Huanglongbing (PNPHLB), creado por resolución N° 517/09 de la Ex Secretaría de Agricultura, Ganadería, Pesca y Alimentación y luego ratificado por la Ley Nacional N° 26.888-2013.
.
-

- Distribución mundial del HLB. Fuente: SENASA
.
Síntomas
El HLB afecta principalmente a plantas jóvenes. Los árboles se vuelven improductivos y/o mueren. Todas las especies de cítricos, y sus variedades, son susceptibles a la enfermedad.
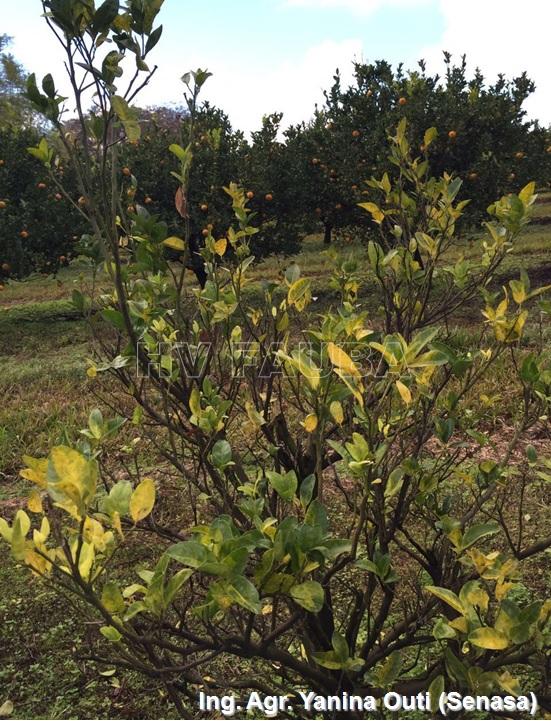
El síntoma inicial es el amarillamiento de una rama superior que contrasta con el verde normal. La enfermedad es sistémica, afecta a toda la planta. Sin embargo, su distribución es desigual: se observan algunas hojas con síntomas y otras, sin ellos. Los síntomas son más evidentes en otoño e invierno.
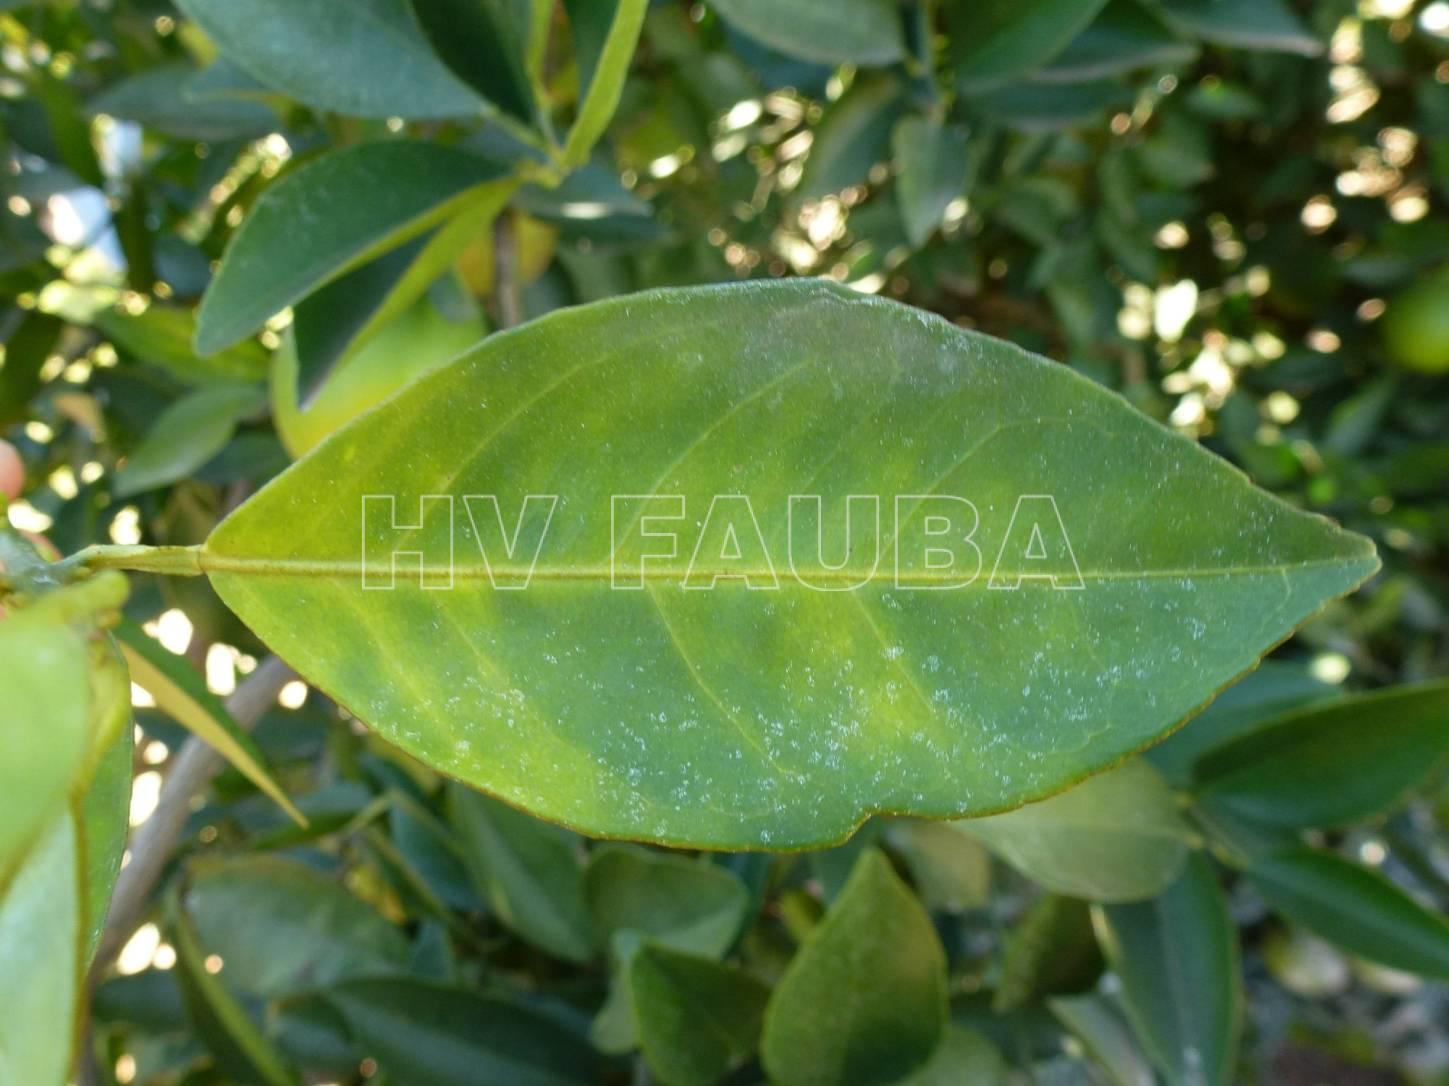
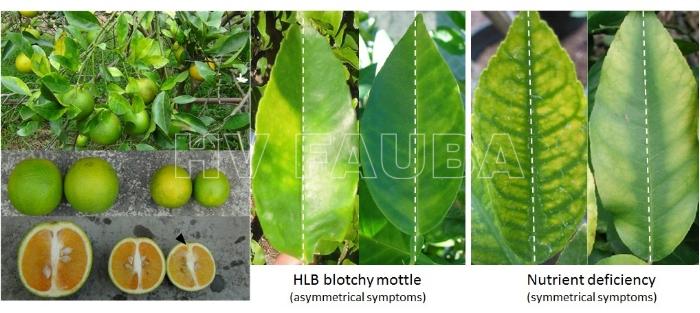
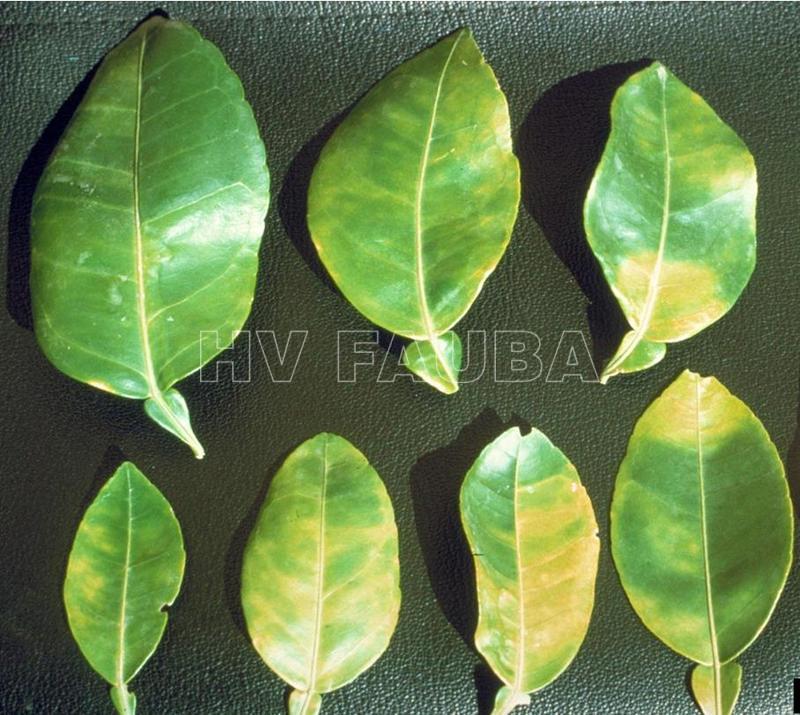
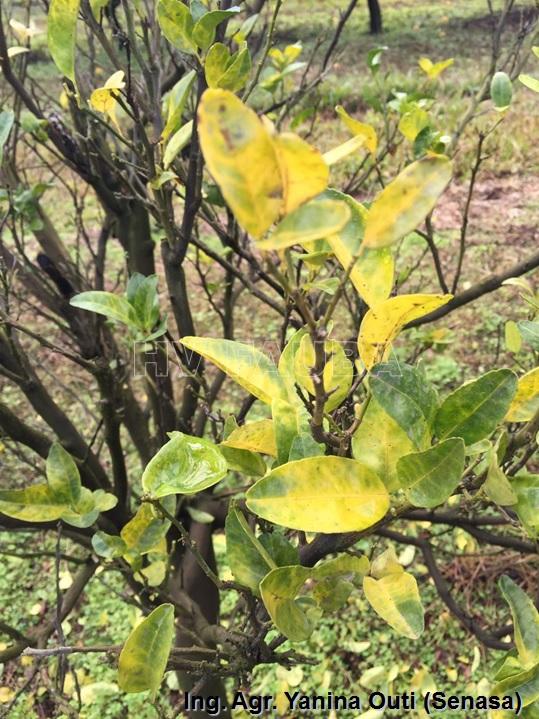
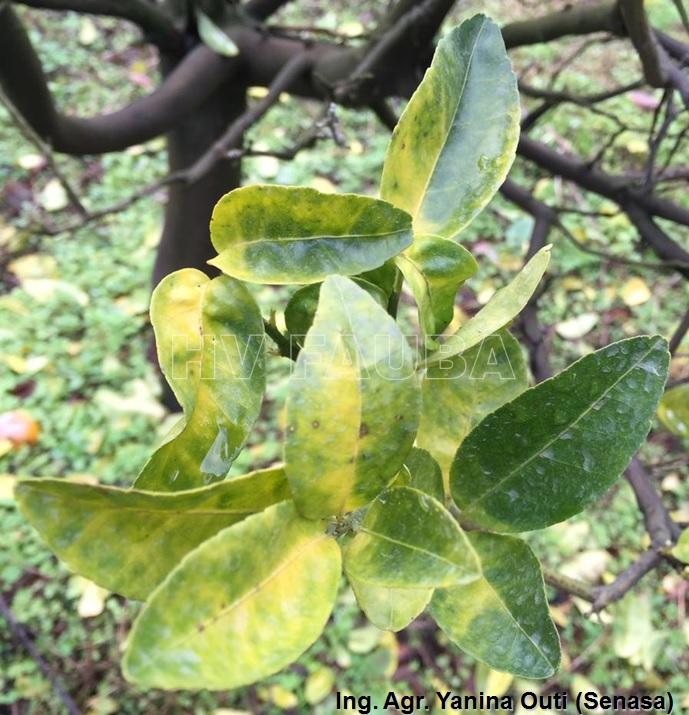
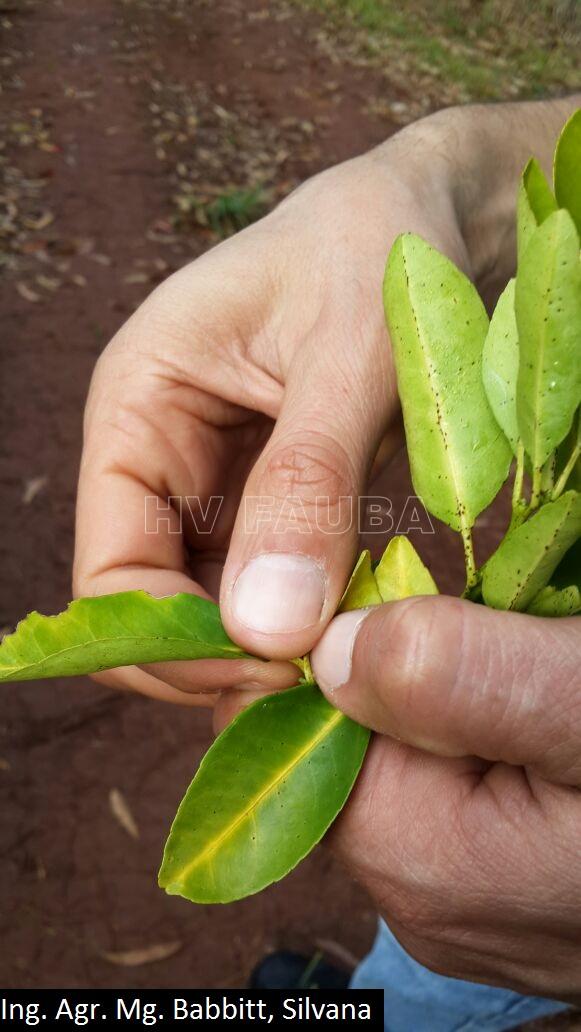
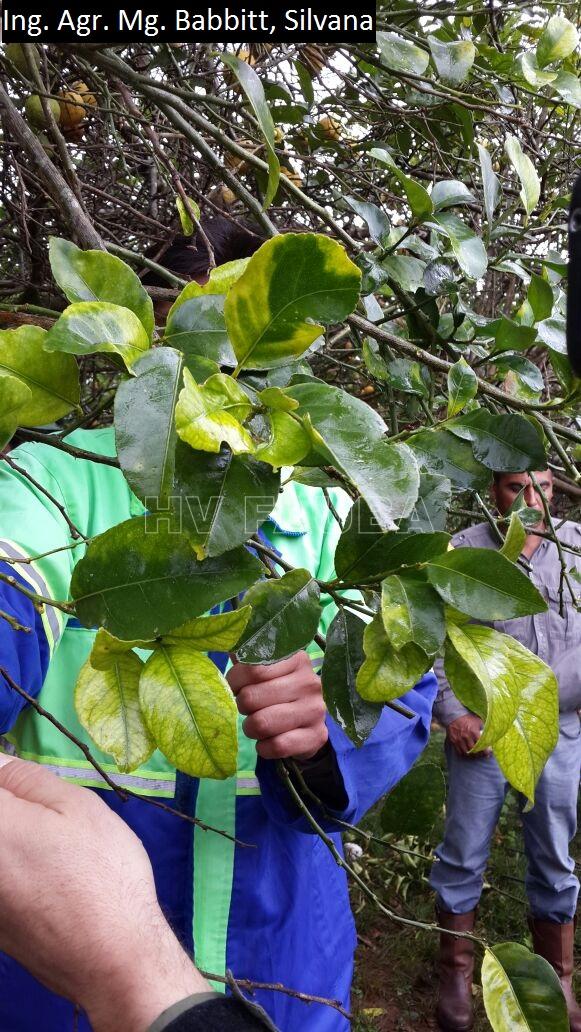
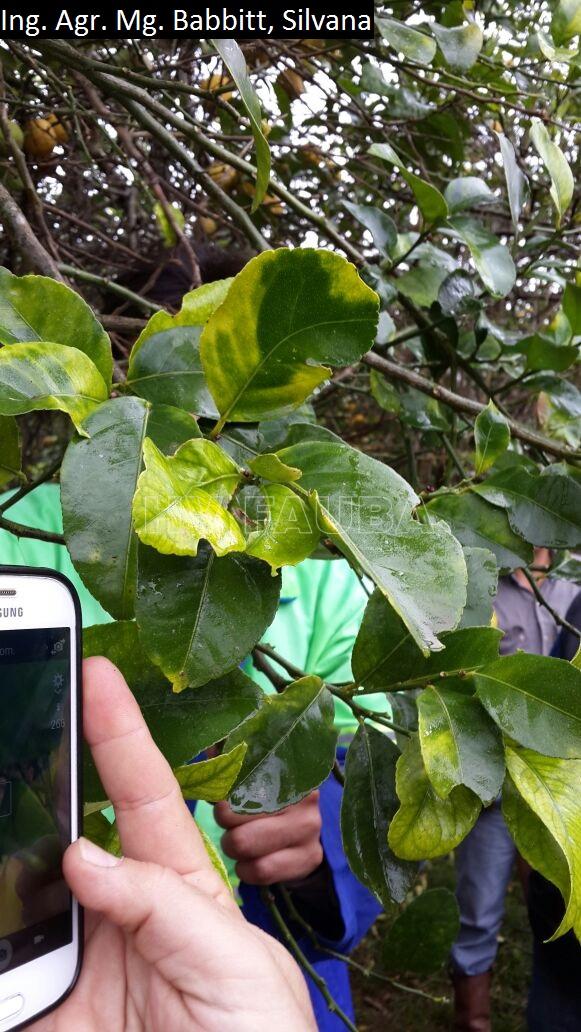
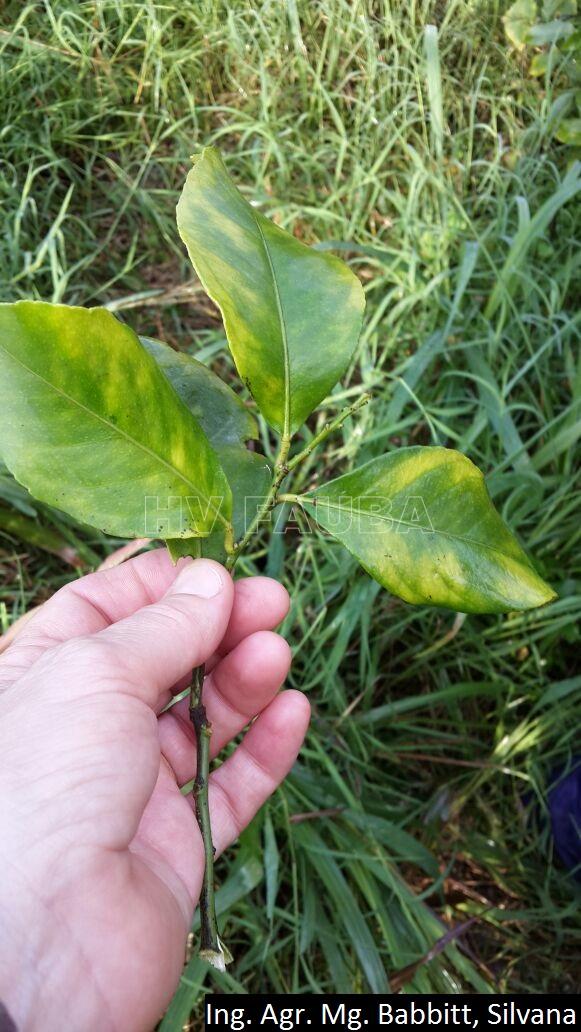
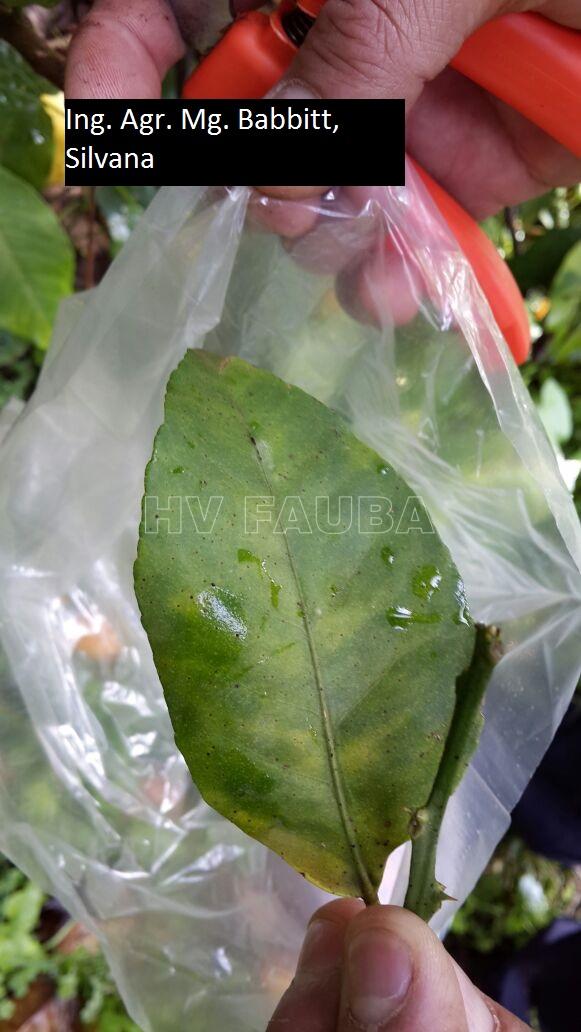
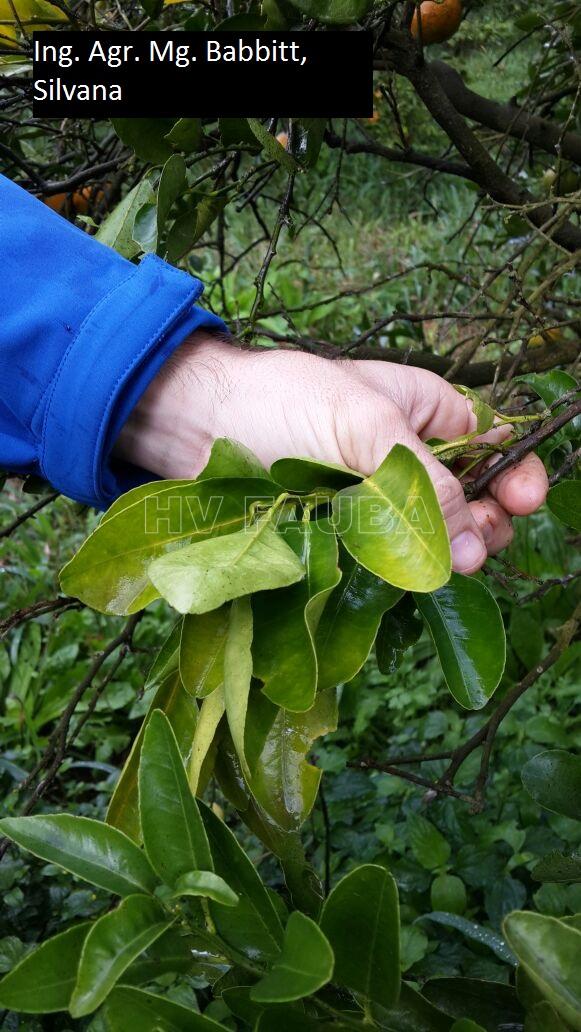
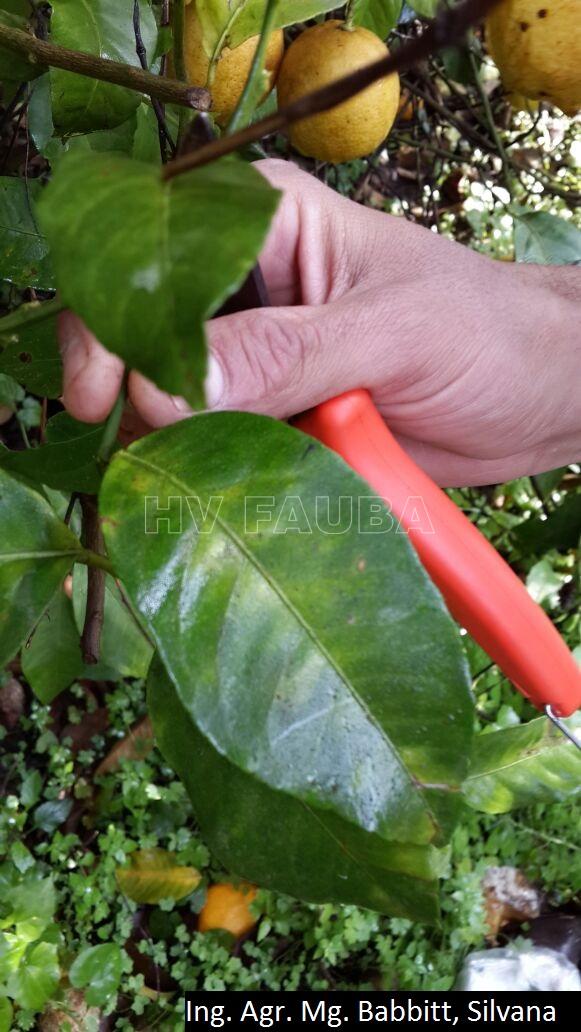
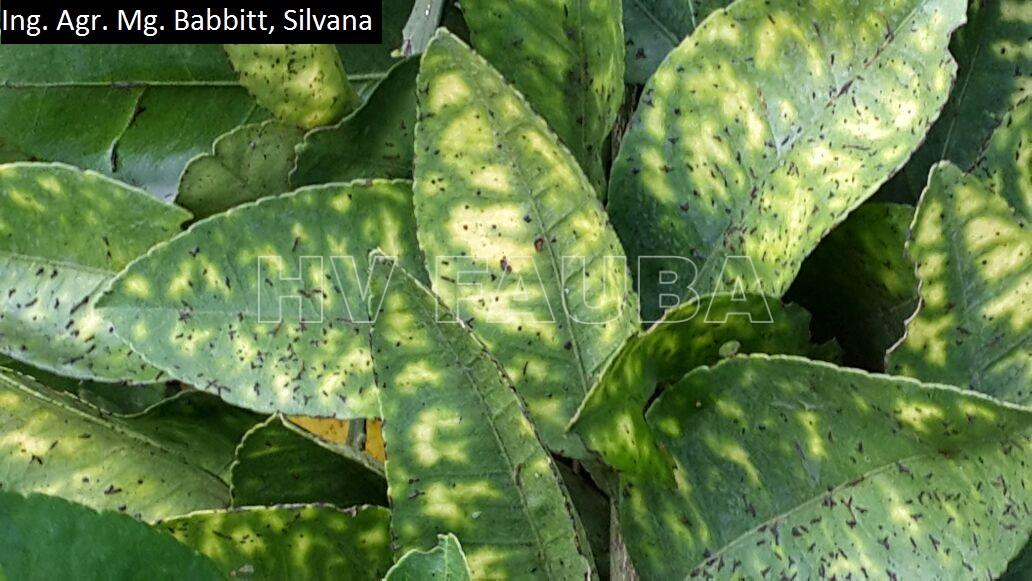
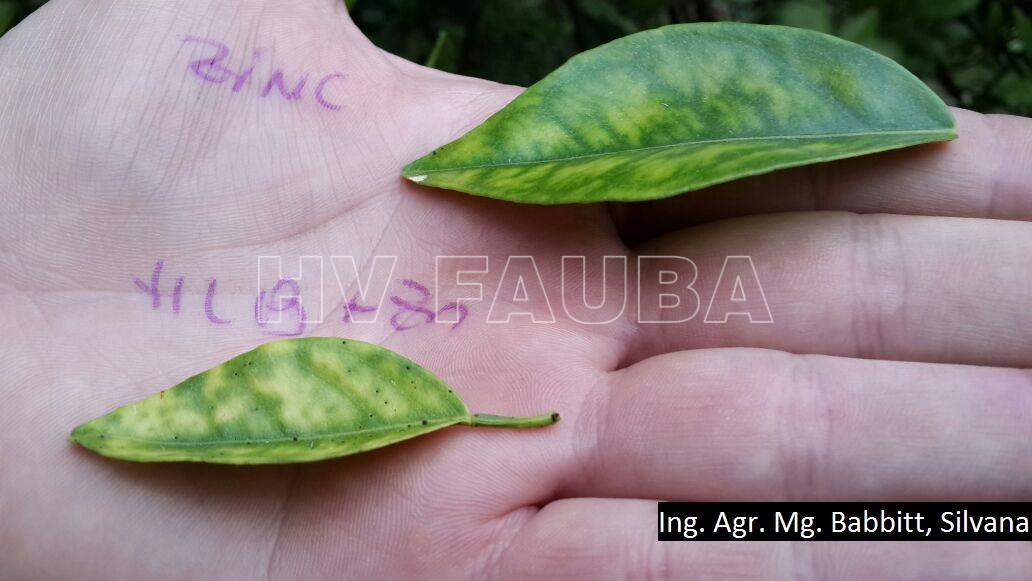
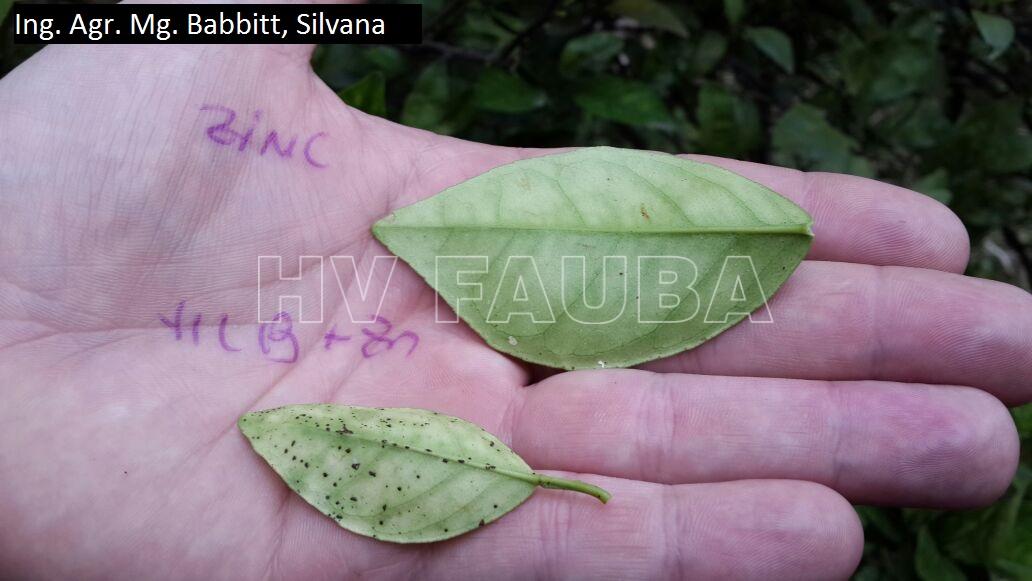
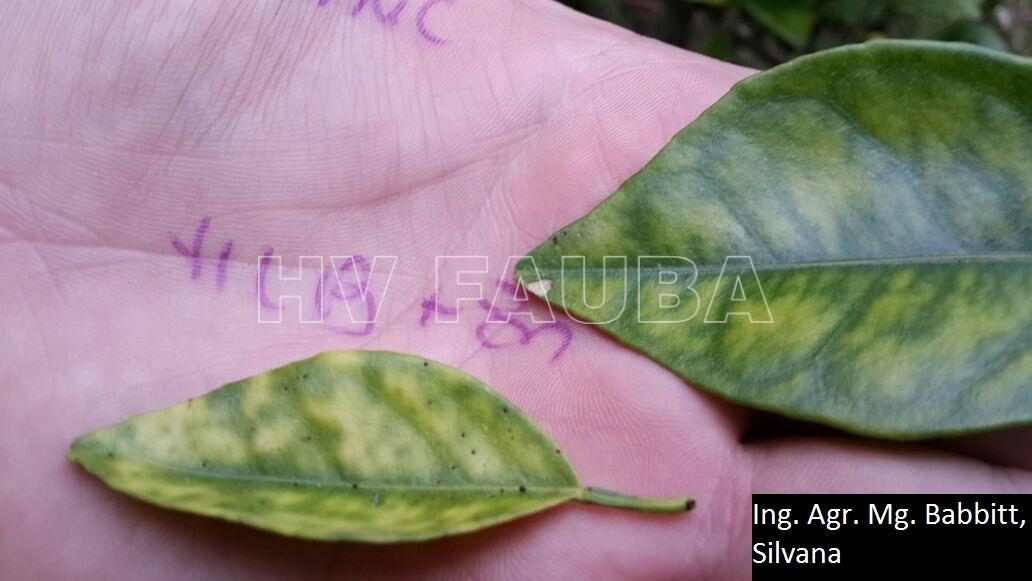
Hojas: moteado de bordes no definidos. Este consiste en una coloración amarillo pálido con áreas de color verde irregulares. Además, se produce defoliación, engrosamiento corchoso y aclaramiento de nervaduras. La asimetría de síntomas produce que de un lado de la nervadura central de la hoja se observen moteados, mientras que en el otro lado no se presenten.
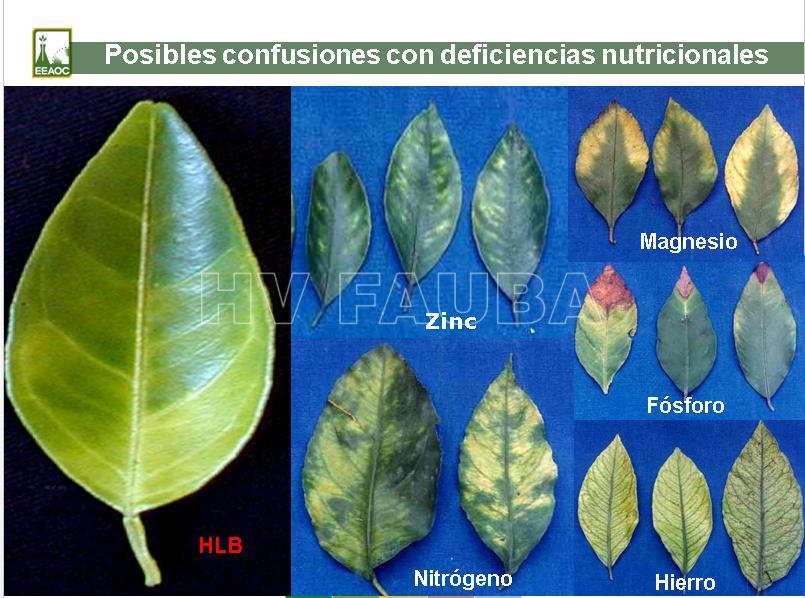
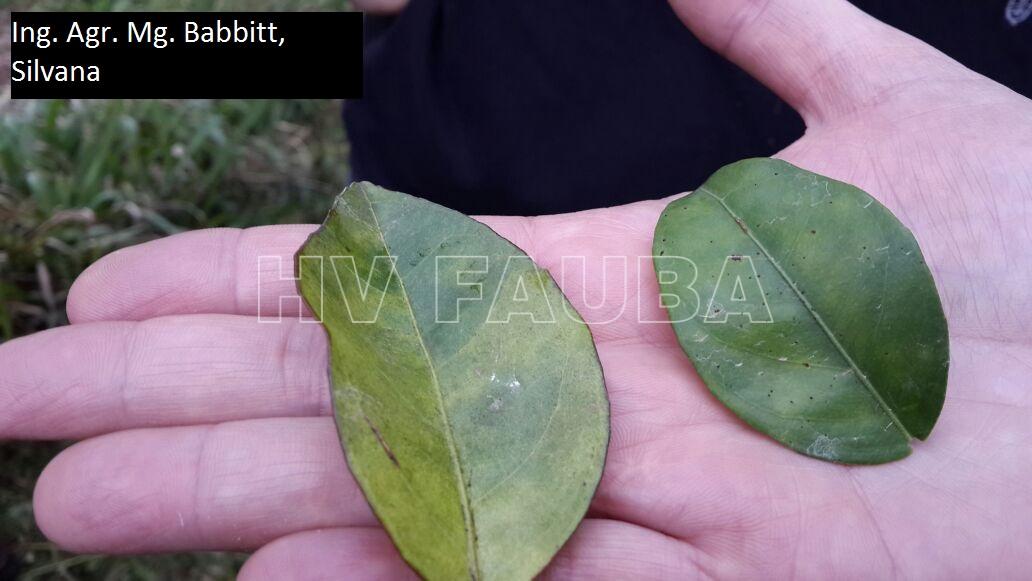
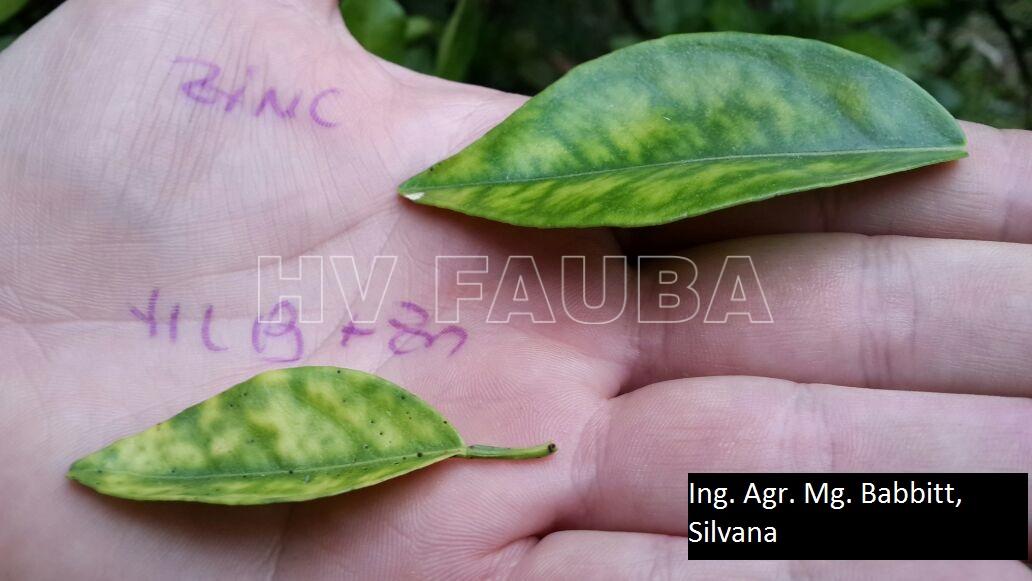
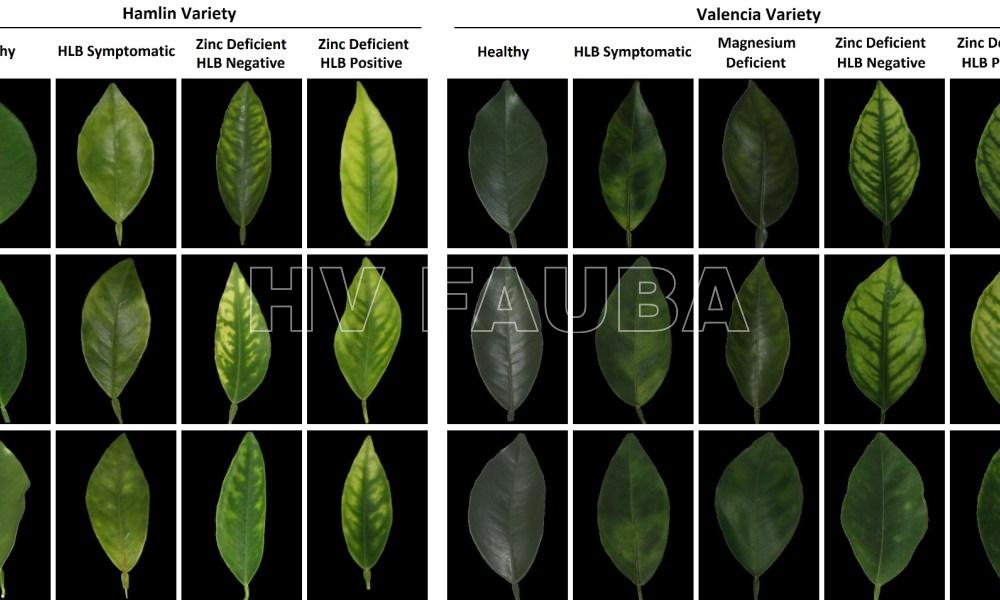
Estos síntomas puede confundirse con deficiencias de nutrientes (nitrógeno, zinc, magnesio o manganeso) y también con enfermedades como gomosis (Phytophthora sp.) y clorosis variegada de los cítricos (Xylella fastidiosa).
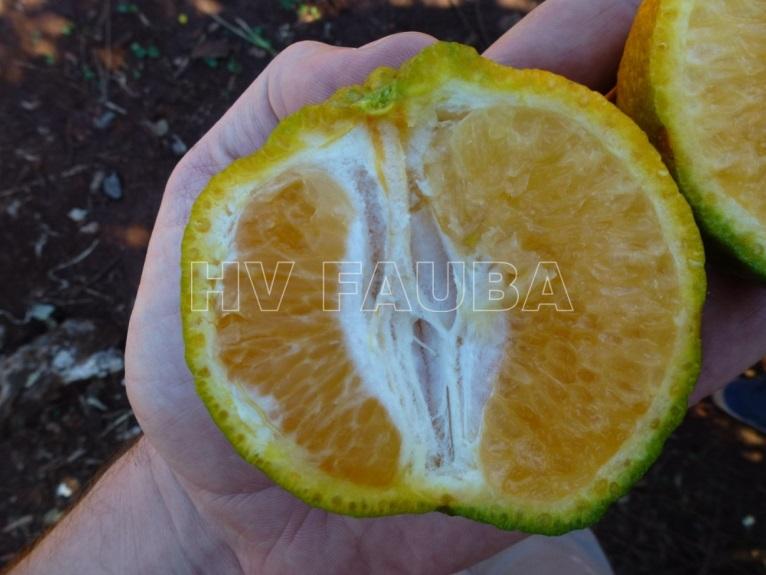
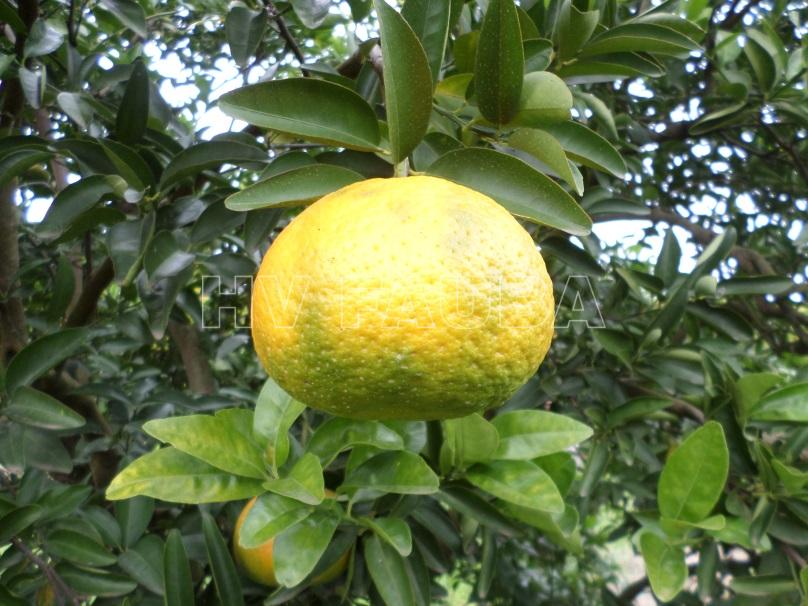
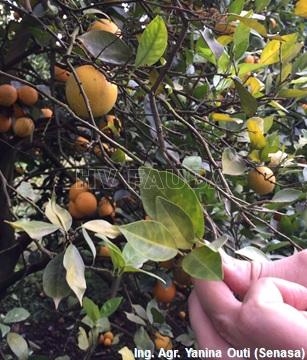
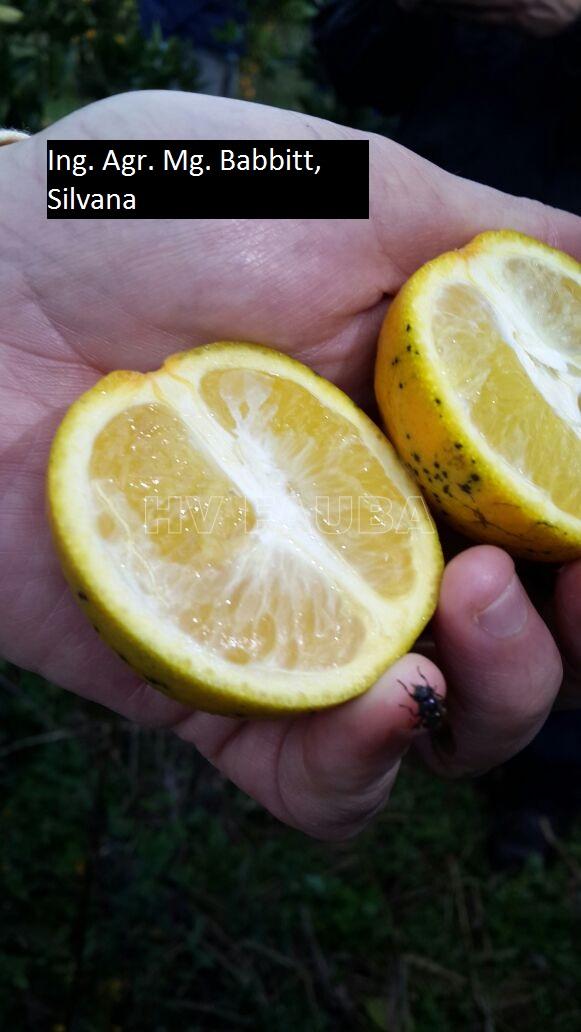
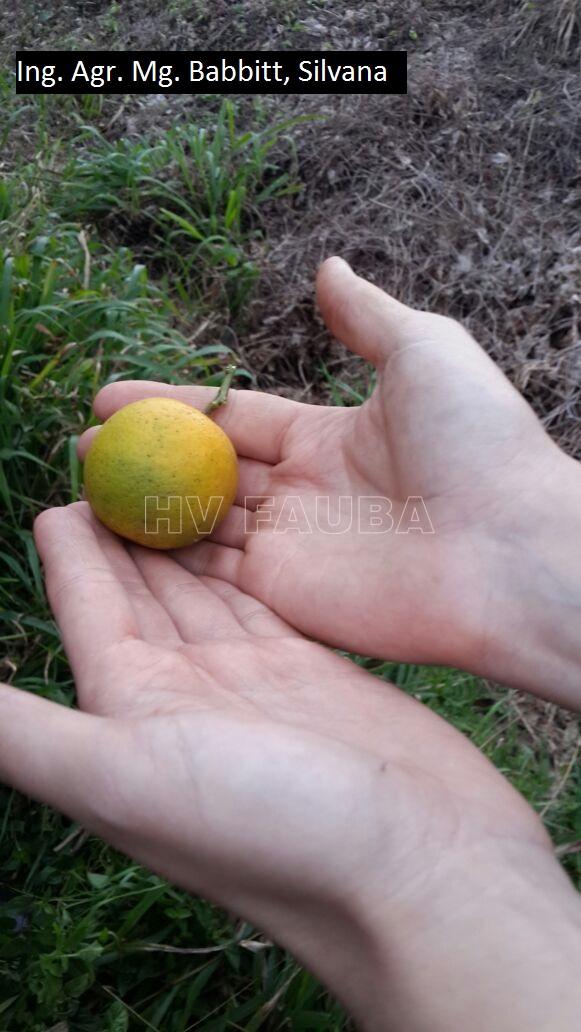
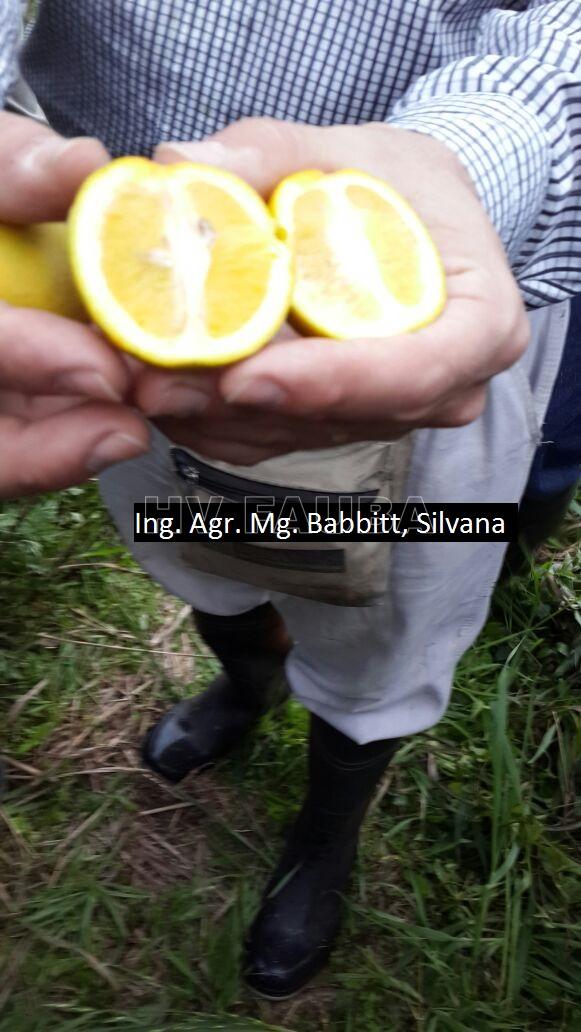
Frutos: los síntomas en los frutos afectados por HLB incluyen frutos pequeños y deformes, asimetría (corte transversal), con una inversión anómala del color (verdes en el extremo de la flor y anaranjados cerca del tallo), semillas abortadas o malformadas, jugo amargo y salado y una mancha amarilla debajo del cáliz. El fruto también tiene un núcleo central curvado y puede tener mal sabor, lo que lo hace desagradable al paladar.
.
El desarrollo de síntomas producto por la enfermedad es un proceso complejo y se basa en una red metabólica de múltiples capas que está regulada principalmente por fitohormonas. Los metabolitos de los cítricos desempeñan funciones vitales en el desarrollo de los síntomas del HLB a través de la modulación del metabolismo de los carbohidratos, la homeostasis de las fitohormonas, las vías antioxidantes o mediante la interacción con otras vías metabólicas, en particular que involucran aminoácidos, pigmentos foliares y poliaminas (Nehela y Killiny, 2020).
Los síntomas de las tres formas generales de HLB (la forma asiática, africana y americana) son similares. La forma asiática es más tolerante al calor y expresa síntomas tanto en condiciones frías como cálidas. La forma asiática es más severa en la mayoría, si no en todas, las especies de cítricos comerciales, causando muerte regresiva y eventualmente puede resultar en la muerte del árbol; mientras que la forma africana de HLB expresa síntomas solo en condiciones frías (20-25°C) y podría suprimirse. por exposición prolongada a temperaturas superiores a 30°C. La forma africana es más severa en mandarinas y naranjas dulces, mientras que los limones, limas y pomelos son más tolerantes (Gottwald et al., 2007; Nehela y Killiny, 2020).
.
VIDEO DESCRIPTIVO DE SÍNTOMAS: INTA
.
-
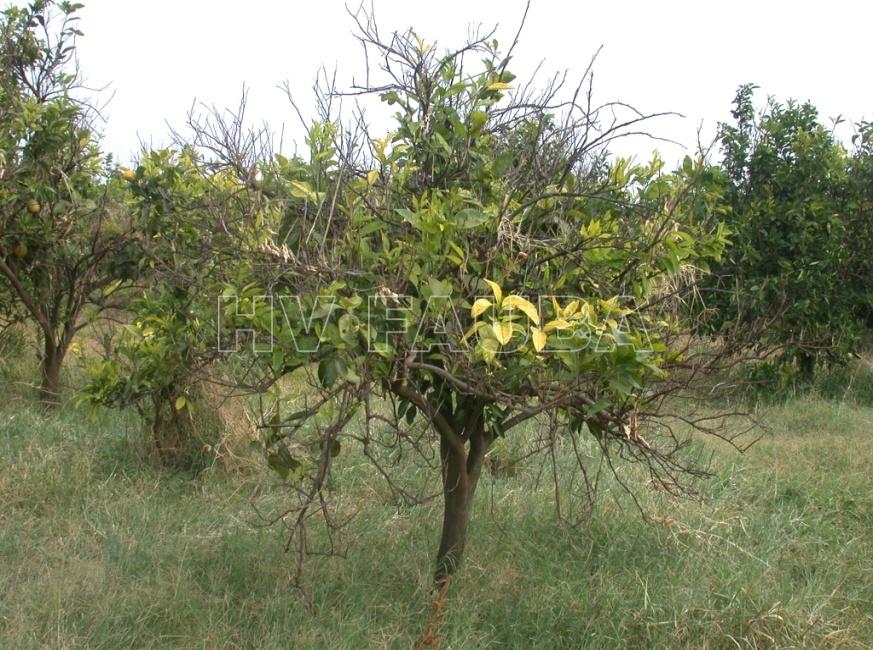
- Aspecto general de una planta afectada por HLB. Funte: FUNDECITRUS.
-
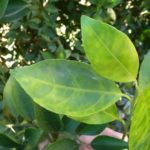
- Síntomas de moteado difuso. En plantas con síntomas de HLB, el cambio del color verde natural de la hoja al color amarillento no es abrupto ni sigue patrones definidos como corresponden a otras enfermedades o deficiencias de nutrientes. Fuente: SENASA

-
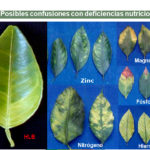
- Comparación entre síntomas de HLB y deficiencias nutricionales. Otros de los síntomas del HLB en hojas se observa como un amarillamiento de la nervadura central, y en algunos casos de las laterales. El engrosamiento de éstas, provoca una leve lesión sobre la superficie contigua de la hoja, que se cubre de un tejido de aspecto corchoso. Fuente: EEAOC
-
- Hojas con nervaduras amarillas, uno de los posibles síntomas observados en las hojas. Fuente: SENASA.

-
- Formación de corcho sobre las nervaduras engrosadas. Fuente: SENASA
-
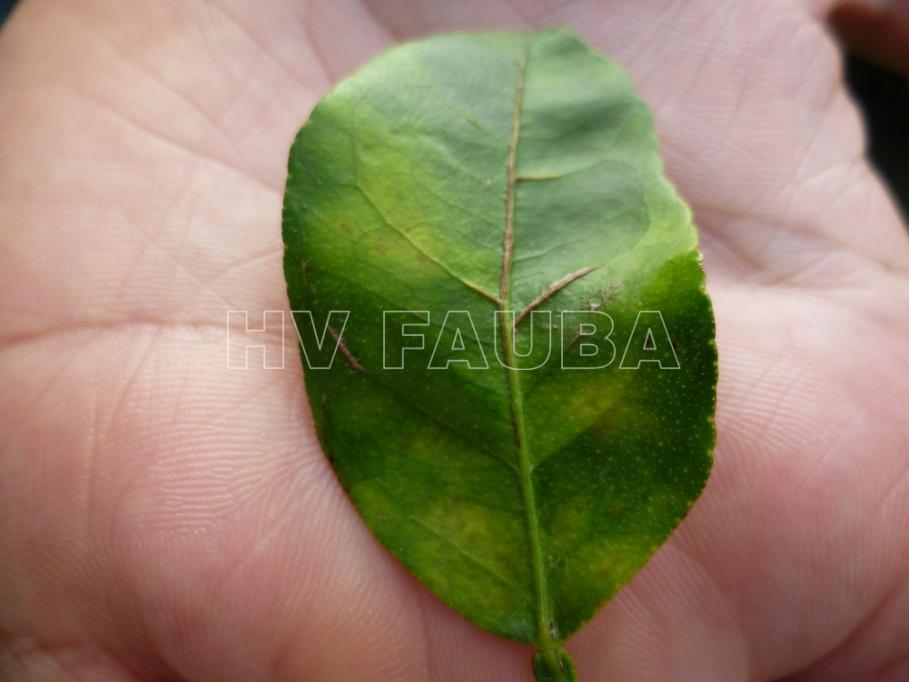
- Múltiples síntomas de HLB: moteado difuso y nervadura central amarilla y algo engrosada. Fuente: SENASA
-
- Fruto con síntomas de HLB: maduración invertida, asimetría y coloración anaranjada de la zona placentaria. Fuente: SENASA
-
- Maduración invertida en frutos. Estos pierden todo atributo comercial, se vuelven más ácidos y tienden a tener una sensación de corcho cuando son consumidos. Fuente: SENASA
-
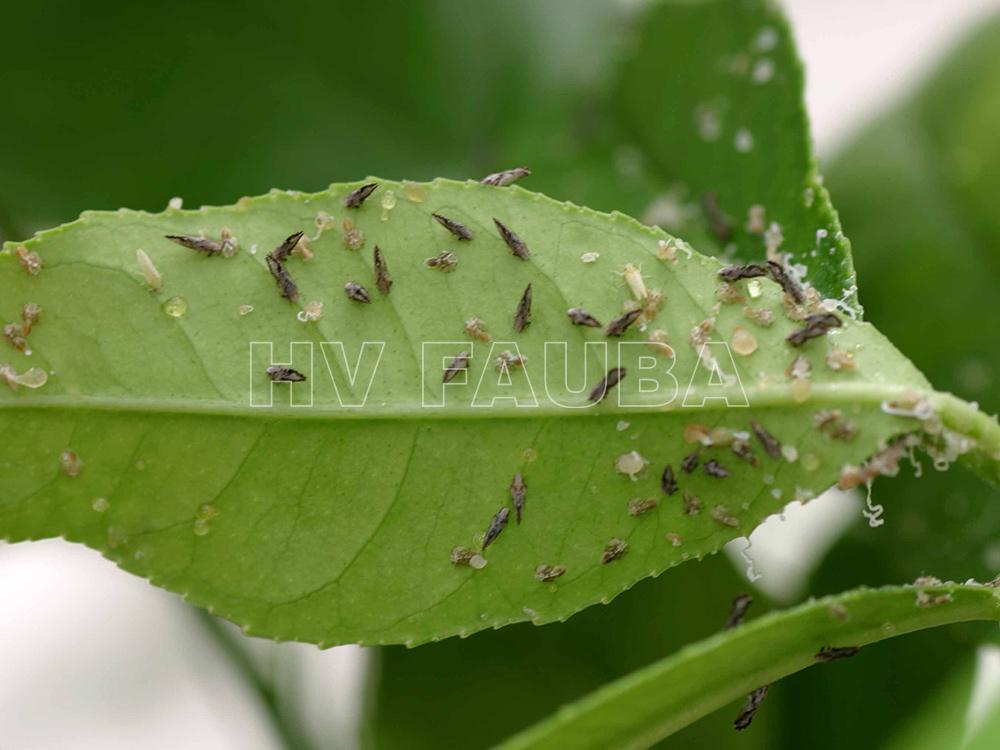
- Adultos y ninfas jóvenes del psílido Diaphorina citri, insecto vector del HLB, que se alimentan de hojas y tallos de cítricos.
-
- 01 Síntomas foliares del HLB en Citrus. Autor: Grafton-Cardwell B
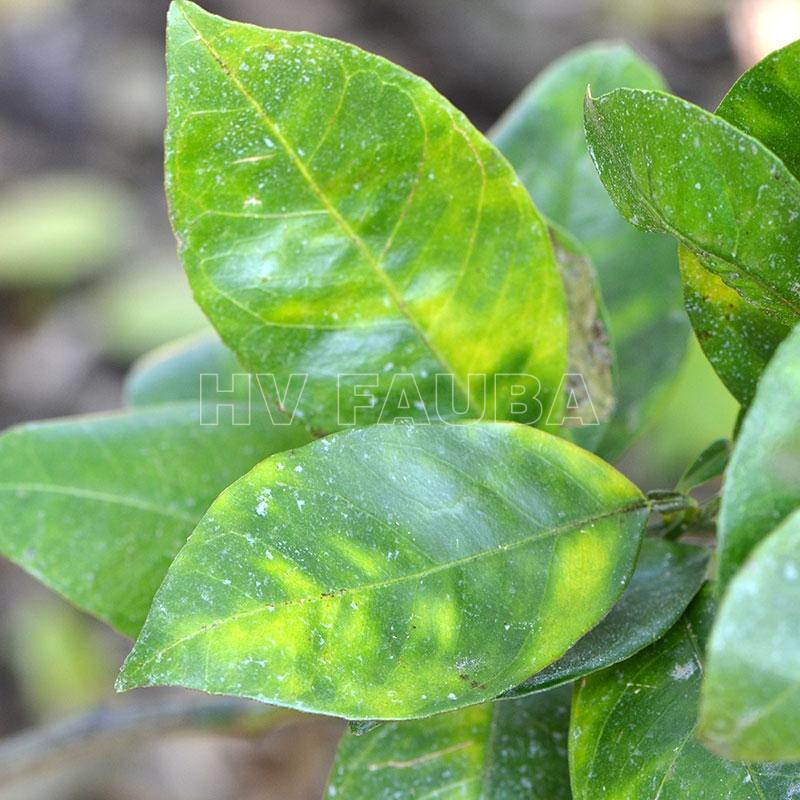
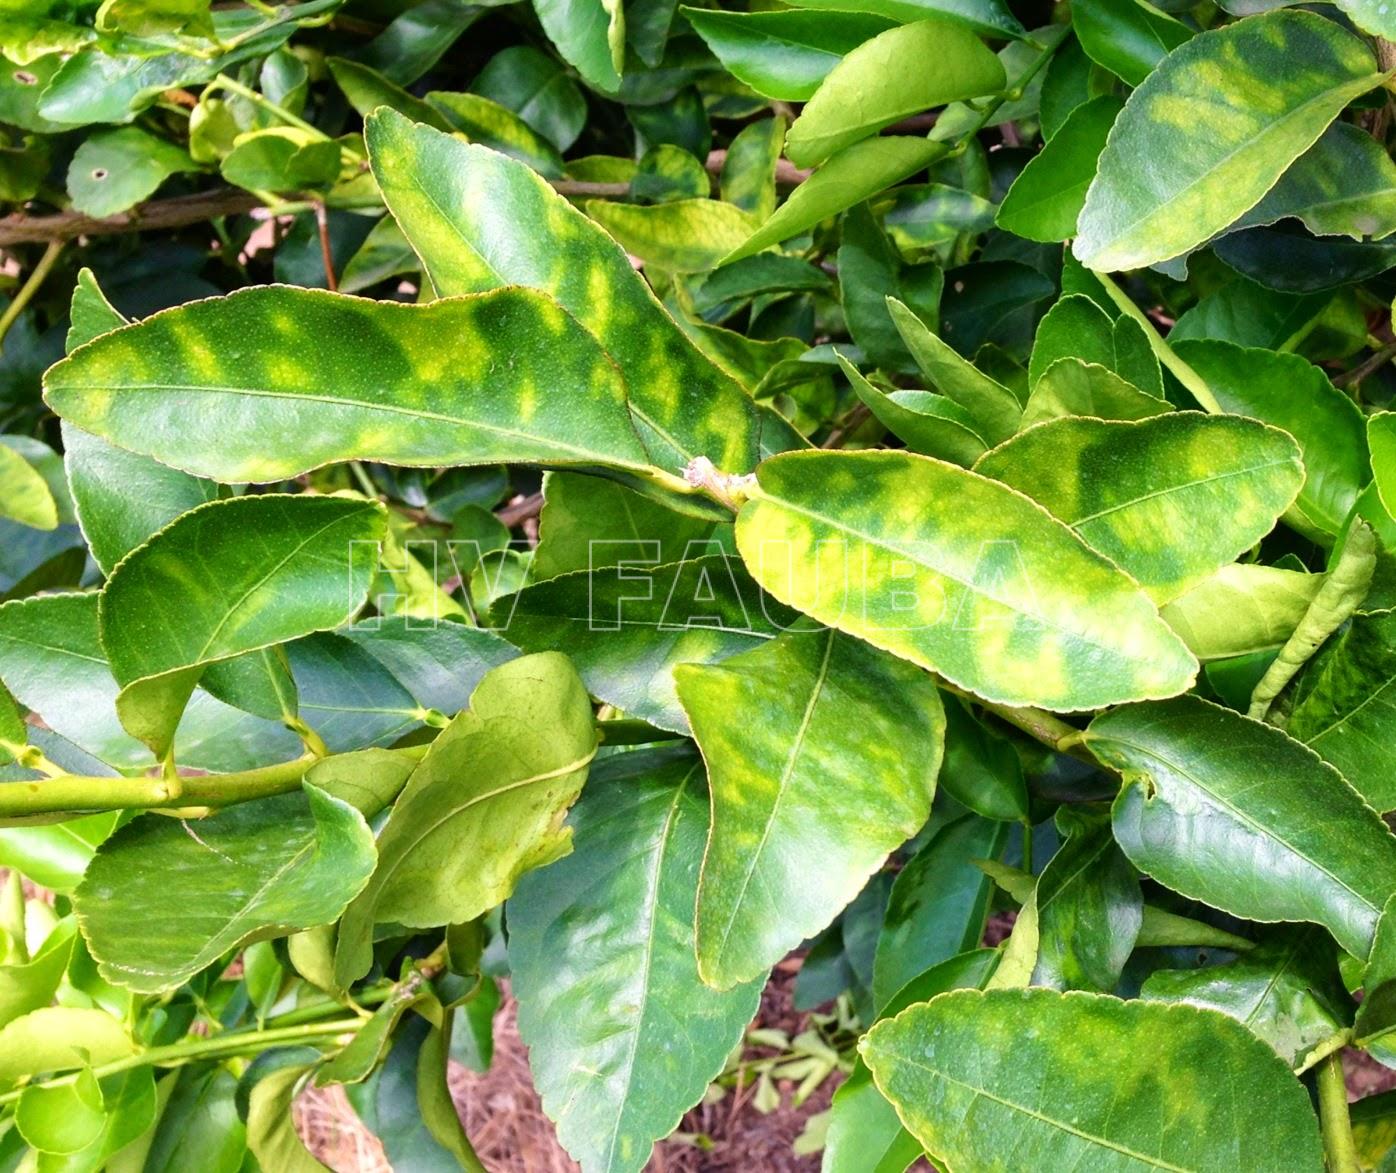
-
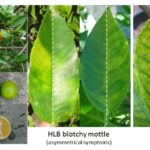
- 02 Comparación de síntomas foliares de HLB con deficiencias nutricionales, y diferente crecimiento del fruto.
-
- Síntomas de HLB en hojas de pomelo
-
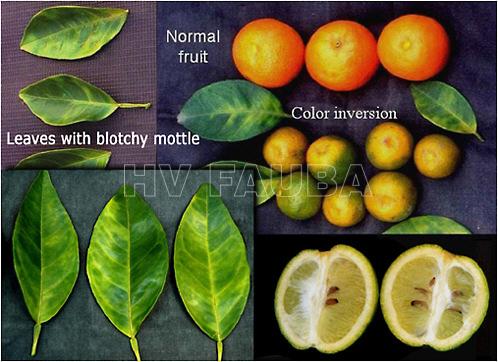
- Síntomas de HLB en hojas y frutos de cítricos. Angulo inferior derecho: Fruta ladeada con semillas abortadas y haces vasculares parduscos Autor: J. M. Bové, La Brède, France.

-
- 01 Hojas con síntomas de HLB: engrosamiento y cambio de coloración de nervaduras.
-
- 02 Hojas con síntomas de HLB

-
- 03 Hojas con síntomas de HLB
-
- 04 Hojas con síntomas de HLB
-
- 05 Hojas con síntomas de HLB
-
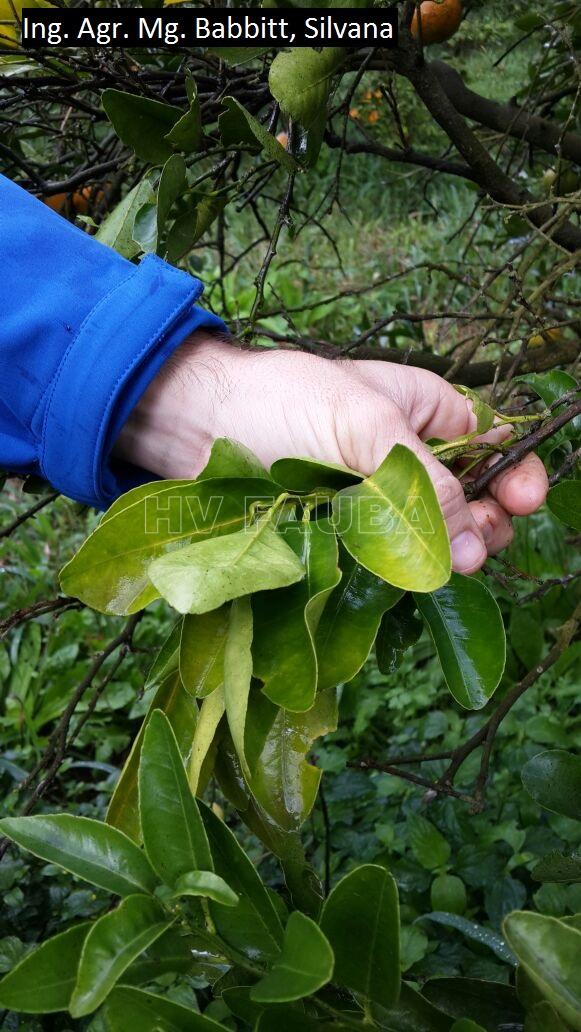
- 06 Hojas con síntomas de HLB
-
- 07 Hojas con síntomas de HLB
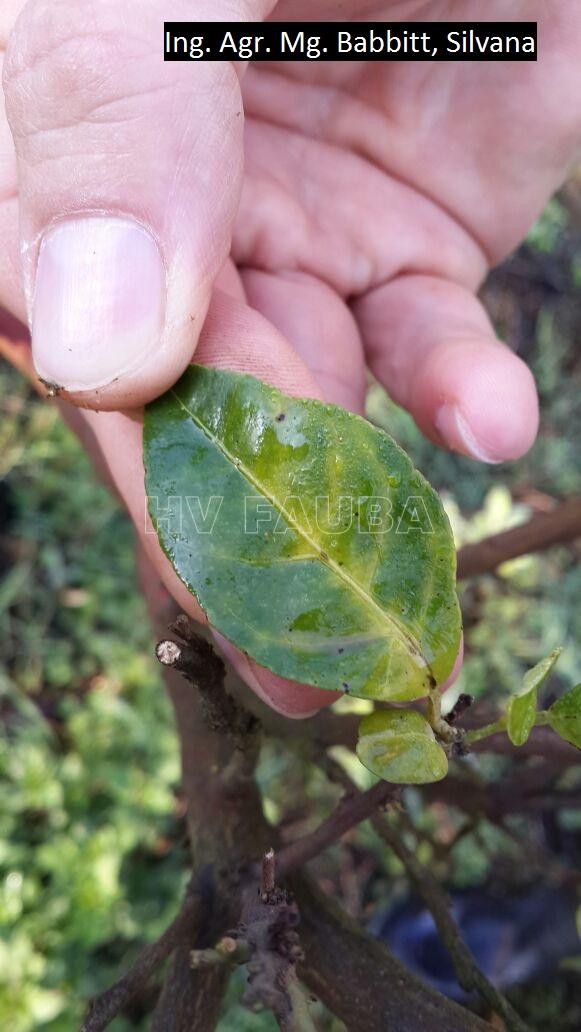
-
- 08 Hojas con síntomas de HLB
-
- 09 Hojas con síntomas de HLB
-
- 10 Hojas con síntomas de HLB
-
- 13 Frutos de plantas con HLB. Columnela de color naranja o amarillo fuerte.
-
- 12 Frutos de plantas con HLB. Sintoma tipico de maduración invertida.
-
- 14 Frutos de plantas con HLB. Columnela de color naranja o amarillo fuerte.
.
.
Diagnóstico y Detección
El diagnóstico del HLB puede realizarse inicialmente mediante la observación de síntomas característicos, aunque la inspección visual por sí sola no es suficiente para confirmar la enfermedad. El síntoma foliar más característico es el moteado asimétrico o blotchy mottle, que no respeta la nervadura central y permite diferenciarlo parcialmente de algunas deficiencias nutricionales, generalmente más simétricas. Sin embargo, los síntomas pueden variar según la especie y cultivar de cítrico, la edad de la planta, el estado nutricional, las condiciones ambientales y el tiempo transcurrido desde la infección. Además, los árboles infectados pueden permanecer asintomáticos durante un período prolongado, constituyendo una fuente potencial de inóculo antes de que la enfermedad sea evidente. El período de incubación de la enfermedad es variable y puede ser de entre 6 a 12 meses o incluso mayor, lo cual dependerá de la edad de las plantas al momento de la infección y del triángulo de la enfermedad.
La confirmación se basa principalmente en métodos moleculares, especialmente PCR convencional y, fundamentalmente, PCR cuantitativa en tiempo real (qPCR), que continúa siendo uno de los métodos de referencia para la detección sensible y específica de ‘Candidatus Liberibacter’ spp. tanto en tejidos cítricos como en insectos vectores. La confiabilidad del diagnóstico depende en gran medida del muestreo, ya que las bacterias presentan una distribución irregular en el floema y pueden encontrarse en bajas concentraciones durante las etapas iniciales de la infección. En consecuencia, una muestra negativa no excluye necesariamente la presencia del patógeno cuando el título bacteriano se encuentra por debajo del límite de detección, especialmente en plantas recientemente infectadas o asintomáticas.
En los últimos años se desarrollaron ensayos de qPCR con mayor capacidad de discriminación y diagnóstico simultáneo. Martins et al. (2025) desarrollaron una qPCR multiplex (triplex) que permite detectar simultáneamente ‘Ca. Liberibacter asiaticus’ (CLas), ‘Ca. L. americanus’ (CLam) y fitoplasmas del grupo 16SrIX, organismos que pueden estar asociados con síntomas foliares similares. El método fue validado tanto en muestras de cítricos como de Diaphorina citri y mostró sensibilidad comparable a métodos de referencia, permitiendo además detectar estos microorganismos en muestras con síntomas típicos, síntomas leves e incluso en algunas muestras asintomáticas. Esta metodología resulta particularmente relevante para regiones de Sudamérica donde diferentes bacterias asociadas a síntomas semejantes pueden coexistir (Cervantes-Santos et al., 2025).
El desarrollo de métodos más rápidos y potencialmente utilizables a campo constituye otra línea activa de investigación. Entre ellos se encuentran los sistemas basados en CRISPR/Cas12a. Wheatley et al. (2021) desarrollaron un ensayo DETECTR que combina amplificación isotérmica con la actividad trans-cleavage de Cas12a y permite detectar específicamente ácidos nucleicos de CLas con elevada sensibilidad. El sistema fue probado en muestras infectadas de cítricos, Catharanthus roseus y psílidos, y además mostró compatibilidad con dispositivos de flujo lateral, lo que abre la posibilidad de desarrollar herramientas de diagnóstico portátiles. Sin embargo, estas metodologías deben considerarse por el momento herramientas emergentes o complementarias, mientras que la qPCR continúa siendo la técnica molecular ampliamente utilizada para confirmación diagnóstica y vigilancia fitosanitaria.
Un aspecto crítico del diagnóstico temprano es, por lo tanto, la estrategia de muestreo. Debido a la distribución heterogénea del patógeno, resulta conveniente seleccionar tejidos con síntomas compatibles cuando éstos estén presentes, particularmente hojas maduras de ramas sintomáticas, y realizar muestreos representativos de diferentes sectores de la copa. En plantas sospechosas pero asintomáticas puede ser necesario incrementar el número de muestras o repetir el análisis posteriormente. La detección molecular del patógeno en D. citri constituye asimismo una herramienta epidemiológica de gran utilidad para los programas de vigilancia, ya que puede revelar circulación de CLas incluso antes de observarse síntomas evidentes en las plantas.
Los agentes causales del HLB, las especies de bacterias Candidatus Liberibacter spp. no se puede cultivar aún in vitro (Merfa et al., 2019).
Históricamente, como referencia, de acuerdo con un estudio realizado por Irey et al. (2006), si una inspección visual revela un n% de árboles sintomáticos, se espera que haya aproximadamente un 2n% de árboles infectados presentes, más una población adicional de árboles infectados que siguen siendo subclínicos en relación con la detección por RT-PCR. Sin embargo, este experimento se llevó a cabo en invierno, un tiempo subóptimo para observar los síntomas visuales del HLB. La relación de árboles infectados / sintomáticos probablemente sería mucho mayor si las evaluaciones se hicieran durante la primavera o el verano. Otro estudio posterior, ha estimado experimentalmente que por cada planta infectada sintomática, confirmada por qPCR, hay un promedio de 13 (entre 2 a 56) plantas infectadas (árboles HLB positivos) pero asintomáticos (T.R. Gottwald, datos no publicados). Por lo tanto, en las plantaciones infectadas con HLB, hay potencialmente muchos más árboles infectados que los detectables visualmente o mediante qPCR. Además, el seguimiento de la aparición de síntomas visuales (monitoreo) puede ser problemático debido a la variabilidad en el tiempo entre la transmisión del vector psílido y la aparición de síntomas visuales entre árboles de la misma edad.
.
Patología – interacción hospedante-patógeno
La bacteria experimenta un movimiento de célula a célula a través del flujo del floema y coloniza diferentes tejidos en los que puede tener diversas interacciones con el hospedante (Lovelace et al., 2024).
Candidatus Liberibacter asiaticus utiliza una salicilato hidroxilasa activa SahA para degradar el ácido salicílico (SA) y suprimir las defensas de las plantas (Li et al., 2017).
Citrus tristeza virus promueve la adquisición y transmisión de ‘Candidatus Liberibacter asiaticus’ por Diaphorina citri (Chen et al., 2023).
No se observó morfología flagelar en Candidatus Liberibacter asiaticus de muestras de cítricos, pero se observaron estructuras similares a flagelos en Candidatus Liberibacter asiaticus del intestino medio de D. citri infectado con CLas (Andrade et al., 2020). Como patógeno transfronterizo, CLas conserva una familia completa de 30 genes que codifican flagelos en su genoma significativamente reducido, entre los cuales el gen de la flagelina (flaA, CLIBASIA_02090) codifica monómeros de los filamentos (Duan et al., 2009). CLas flaA codifica 452 aminoácidos y contiene un dominio conservado de 22 aminoácidos (flg22) en las posiciones 29 a 50 del extremo N. Tiene actividad de patrón molecular asociado a patógenos (PAMP) e induce inmunidad innata en las plantas, incluida la muerte celular vegetal y la deposición de callosa (Zou et al., 2012). El patrón de expresión de los genes de la región flagelar de CLas varía en diferentes hospedantes, con una alta expresión en D. citri infectada con CLas y una expresión baja o nula en plantas de cítricos susceptibles (Yan et al., 2013; Andrade et al., 2020).
.
.
Forma de transmisión
Ca Liberibacter spp. se transmite a través de yemas y de insectos infectados. El insecto vector es el psílido Diaphorina citri (Hemiptera: Liviidae), vulgarmente denominado «Psílido asiático de los cítricos» (Halbert et al., 2004). D. citri se adapta a temperaturas altas, se distribuye ampliamente en el sur de Asia y se extendió a otras regiones productoras de cítricos en el continente americano, y está presente en Argentina en las zonas citrícolas de Salta, Jujuy, Formosa, Misiones, Corrientes, Entre Ríos y Buenos Aires. SENASA declaró una alerta fitosanitaria en agosto de 2025 (Resolución 593/2025) en los partidos de San Pedro y Baradero tras detectar ejemplares de Diaphorina citri, el insecto vector de la bacteria causante del Huanglongbing (HLB), la enfermedad más destructiva de los cítricos. Hasta el presente, D. citri aún no fue detectada en la provincia de Tucumán (principal provincia productora de limones). Actualmente, en todas las zonas citrícolas, el SENASA monitorea la presencia o ausencia del vector. En los casos en donde se detecta, se realizan análisis del insecto mediante la técnica PCR Real Time (qPCR) para comprobar la presencia o ausencia de Ca Liberibacter spp (Morgan et al., 2012).
La transmisión por Diaphorina citri es de manera persistente, propagativa y circulativa (Ammar et al., 2019; Hosseinzadeh y Heck, 2023). Se cree que la bacteria se transmite de una manera persistente propagativa porque la bacteria se encuentra en varios órganos y tejidos de insectos, incluidos el intestino medio, el hemocele, el cuerpo graso, los ovarios y las glándulas salivales (Ammar et al., 2011; Brown et al., 2016; Canale et al., 2017; Ammar et al., 2019). Candidatus Liberibacter asiaticus se acumula dentro de las vacuolas asociadas al retículo endoplasmático en las células intestinales de Diaphorina citri (Ghanim et al., 2017). Luego de que las ninfas adquieren la bacteria, la titulación de esta se incrementa con el tiempo. Aunque los psílidos pueden adquirir Ca. Liberibacter en cualquier etapa de la vida, las etapas ninfales son más eficientes en la adquisición (Pelz-Stelinski et al., 2010, 2016). Está bien documentado que las ninfas de D. citri adquieren la bacteria de manera más eficiente que los adultos, y son capaces de transmitirla en estadios tardíos o después de su aparición como adultos. Sin embargo, los psìlidos adultos inoculan CLas de manera más eficiente que las ninfas cuando las CLas son adquiridas por ninfas en estadio temprano (Ammar et al., 2016; Ammar et al., 2020). Es decir, las ninfas de 4º y 5º estadío pueden adquirir la bacteria y transmitirla a los adultos. El patógeno puede ser adquirido por D. citri adulto después de 15 a 30 minutos de alimentarse de una planta infectada. La adquisición eficiente requiere períodos de alimentación más largos. Después de la adquisición, Ca. Liberibacter asiaticus puede ser detectada en los psílidos a lo largo de sus vidas. El insecto puede vivir hasta 3 meses, que es el tiempo de persistencia de la bacteria en el vector.
CLas coloniza la mayoría de los tejidos de D. citri (Hosseinzadeh et al., 2019). Se ha detectado la presencia de la bacteria CLas con una amplia distribución en el cerebro, las glándulas salivales, el sistema digestivo y el sistema reproductivo tanto de hembras como de machos, lo que indica una infección sistémica de CLas en D. citri (Nian et al., 2023). Por lo tanto, la infección de los órganos reproductivos sugiere la posibilidad de transmisibilidad materna y sexual. Ammar et al. (2011) detectaron CLas en ovarios de D. citri mediante microscopía de hibridación in situ con fluorescencia (FISH). Asimismo, Nian et al. (2023) observaron CLas en todos los huevos puestos y en las subsiguientes ninfas de primer y segundo estadio, lo que indica que un alto porcentaje de embriones y ninfas resultantes de madres infectadas con D. citri estaban infectadas con CLas. Las hembras CLas (+) pueden transmitir el patógeno a su descendencia de manera transovárica a una tasa del 18.9%, mientras que la adquisición de CLas por ninfas del sitio de oviposición donde se alimentan las hembras infectadas aumenta la transmisión a una tasa del 53.8 % (Pelz-Stelinski et al., 2010; Kelley y Pelz-Stelinski, 2019). Hosseinzadeh et al. (2019) encontraron que el análisis de título de CLas mostró títulos más altos en los órganos reproductores masculinos que en los femeninos. Los estudios demostraron que CLas puede transmitirse sexualmente de machos CLas (+) a hembras CLas (-) a una tasa de ~4% y, lo que es más interesante, estas hembras pueden transmitirlo a su descendencia a una tasa de ~0.8 % (Mann et al., 2011). CLas puede ser transportado por los espermatozoides y/u otros fluidos seminales durante el apareamiento, pero solo se puede detectar después de ~7 días de período de latencia, lo que respalda la idea de la propagación de CLas en los órganos reproductores femeninos. Si bien todavía existe un debate en la comunidad científica sobre si CLas se considera un patógeno o un simbionte de D. citri, la pregunta más interesante es si las cepas de CLas transmitidas sexualmente tienen la misma capacidad patogénica en D. citri o si la relación es más simbiótica que aquellas cepas de CLas adquiridas a través del aparato alimentador/intestino.
La infección con otros patógenos puede agravar la situación. Recientemente se ha determinado que infecciones de Citrus tristeza virus promueven la adquisición y transmisión de ‘Candidatus Liberibacter Asiaticus’ por Diaphorina citri (Chen et al., 2023).
Los vientos pueden dispersar los psílidos desde 1,5 hasta 4 km distancia.
Las fluctuaciones poblacionales del psílido están íntimamente relacionadas con el ritmo, cantidad y calidad nutricional de las brotaciones. El adulto coloca los huevos en los brotes tiernos (estadios B1 y B2) siendo estos el recurso alimenticio exclusivo de las ninfas pequeñas (estadios de desarrollo) (Hochmaier et al.).
Una descripción del insecto vector se observa en este video.
Monitoreo del vector del HLB “Diaphorina citri”. INTA
.
-
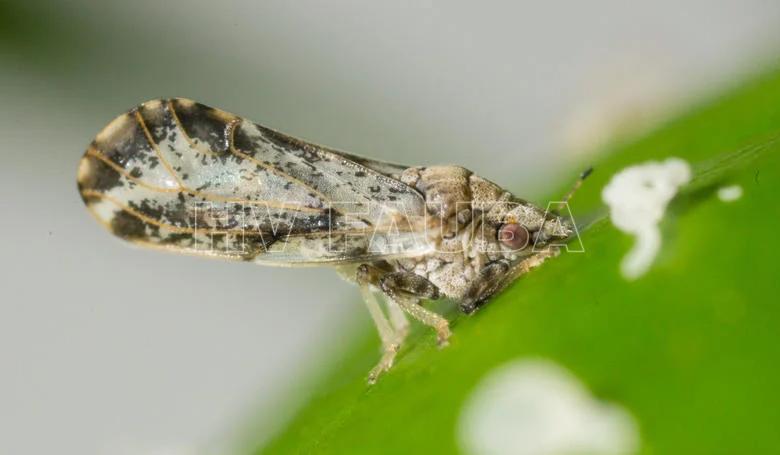
- Diaphorina citri adulto, notar el angulo sobre el cual se posa sobre la hoja de cítrico
-
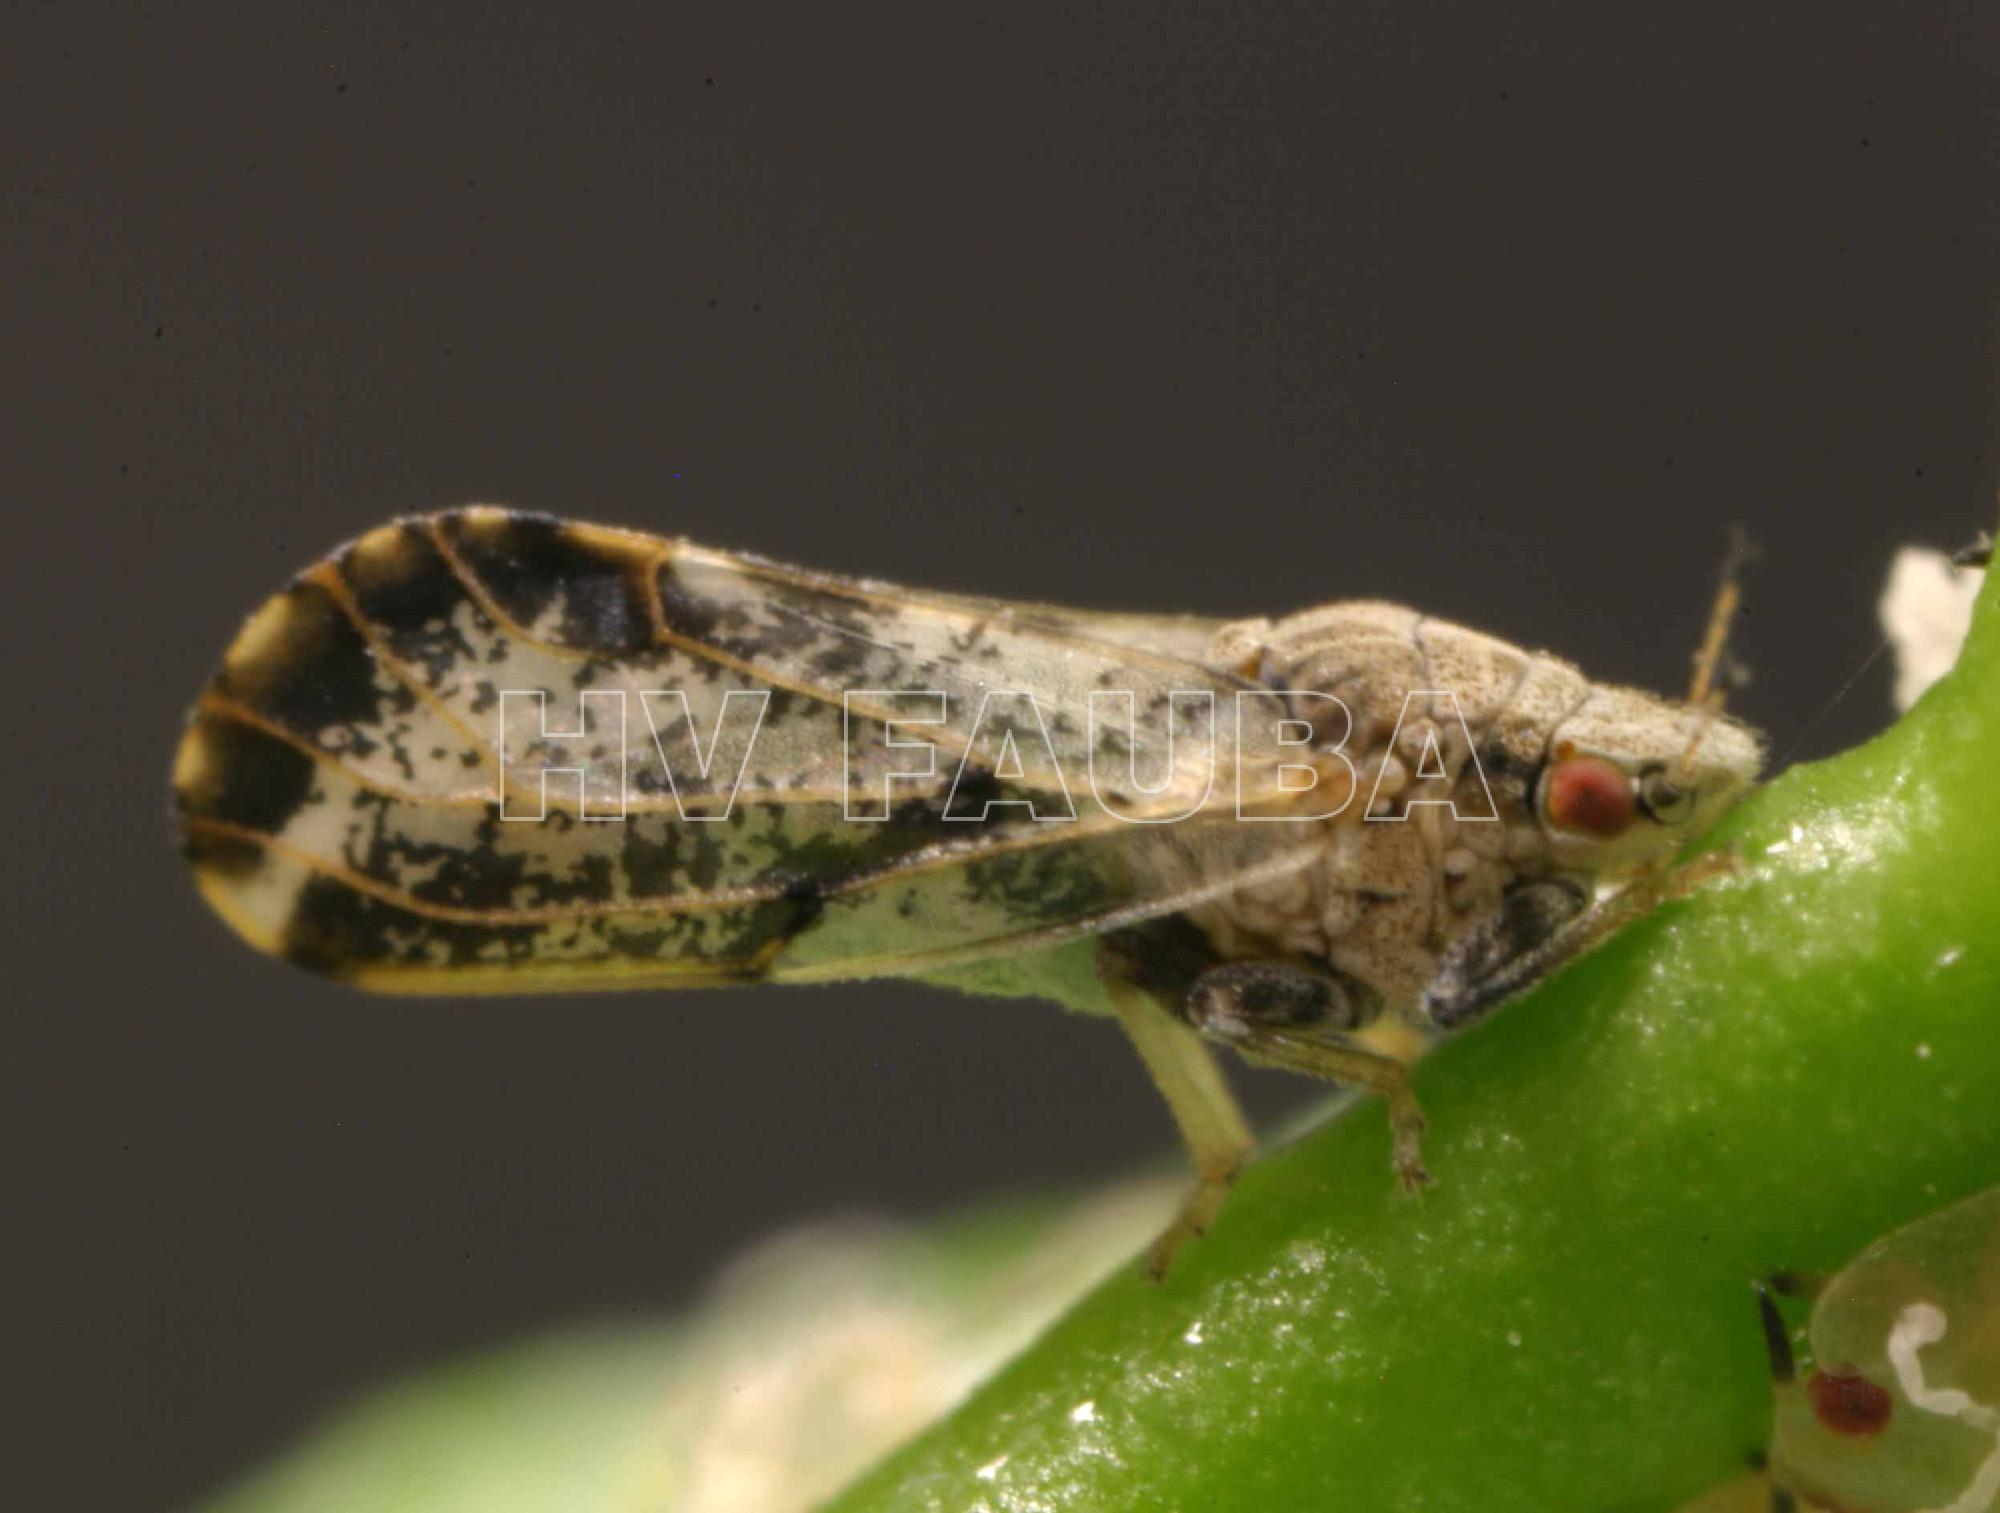
- Diaphorina citri adulto, notar el angulo sobre el cual se posa sobre la hoja de cítrico
-
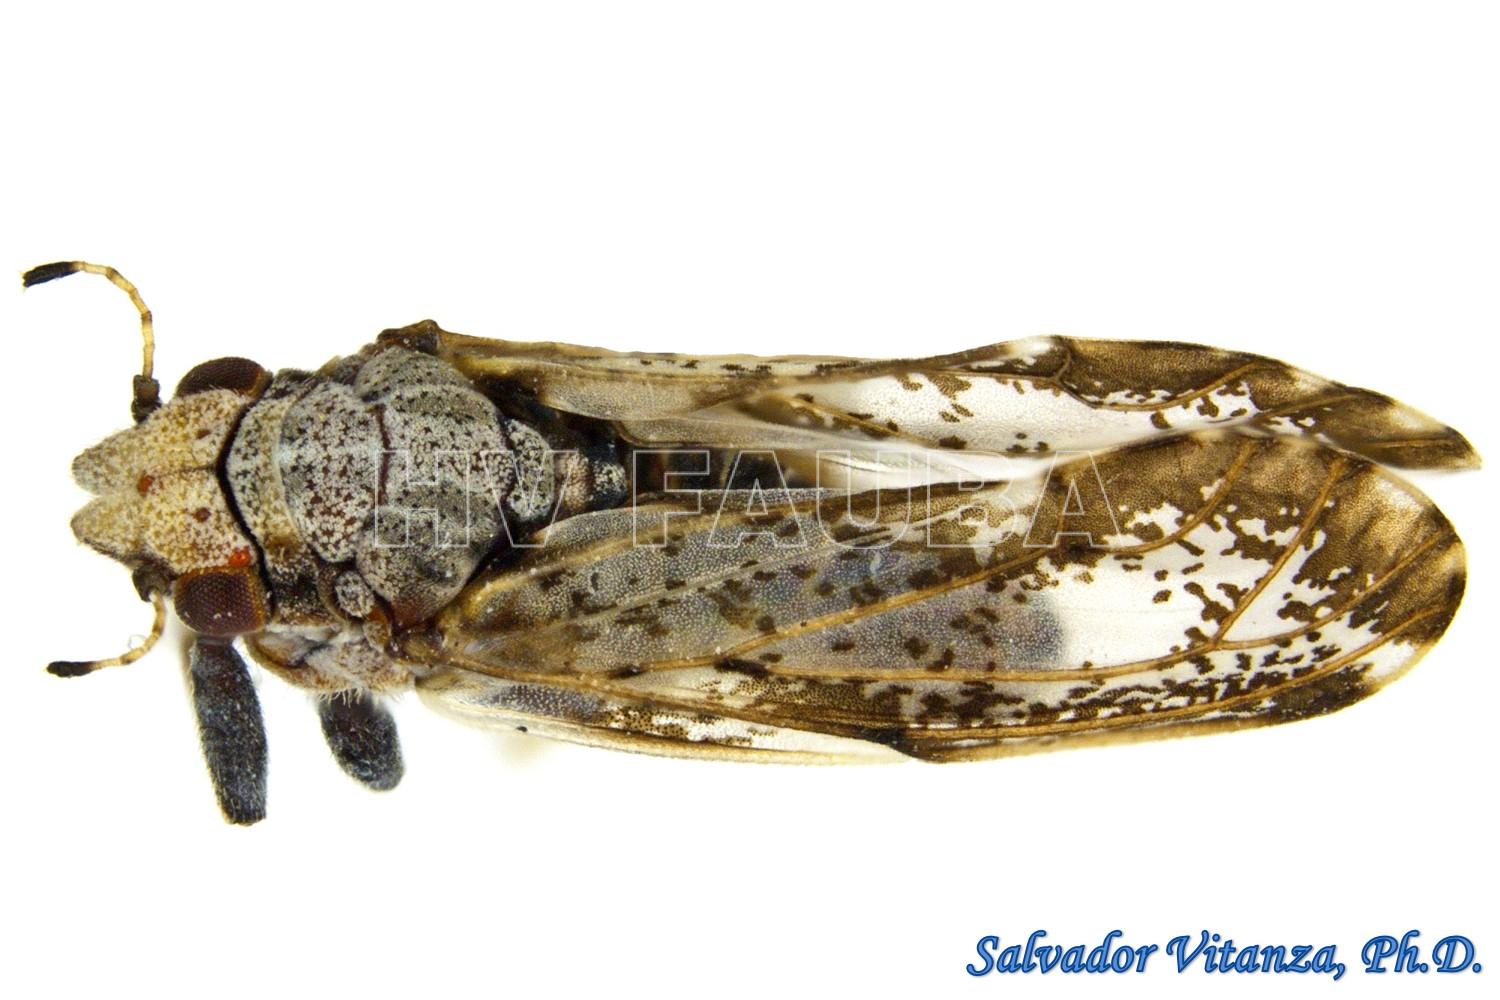
- Adulto de Diaphorina citri adulto. Autor: Salvador Vitanza
-
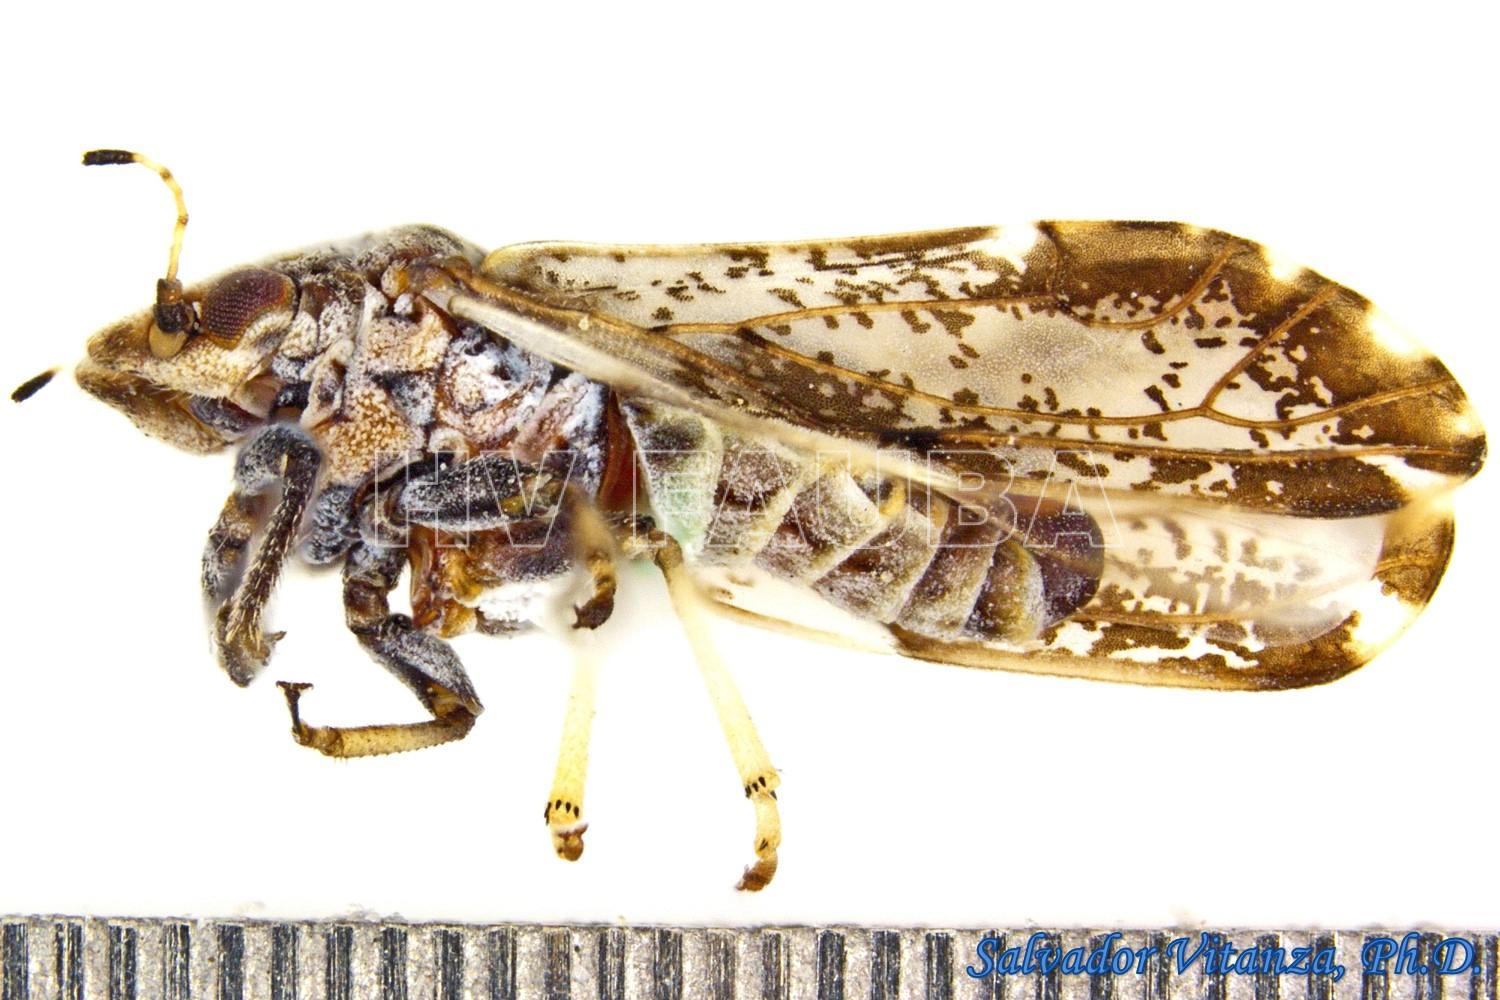
- Adulto de Diaphorina citri adulto. Autor: Salvador Vitanza
-
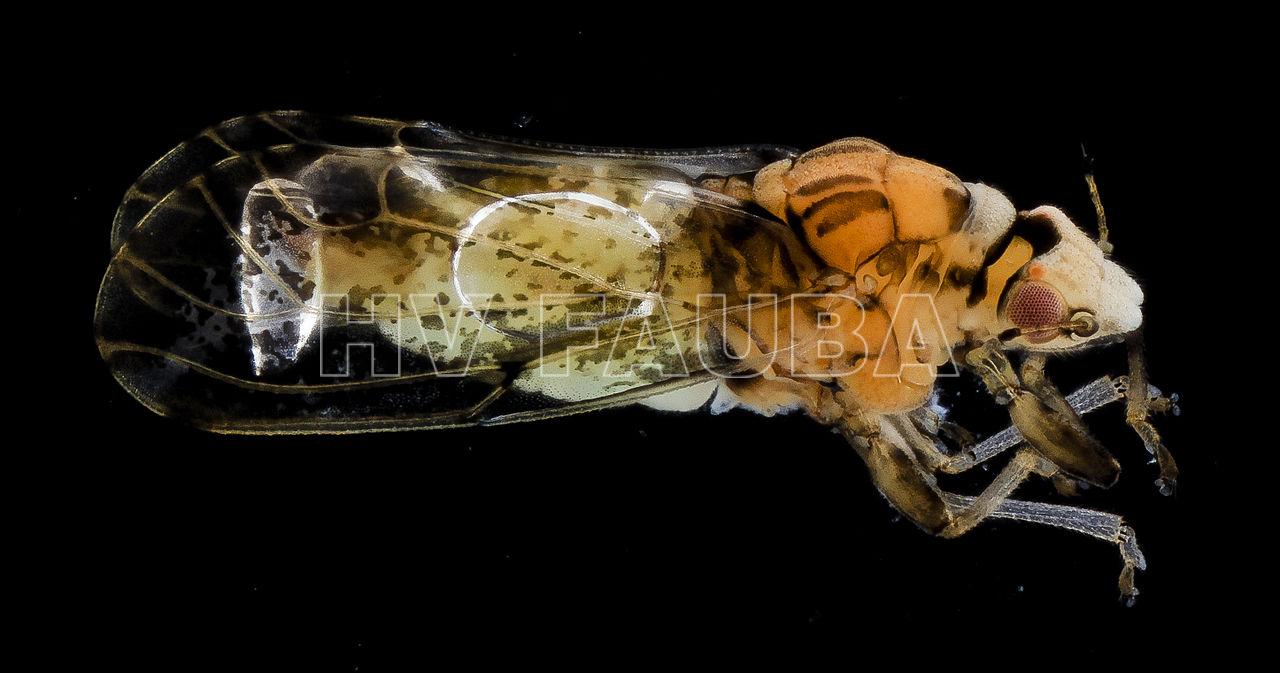
- 01 Psílido asiático de cítricos Autor: Mike Lewis/UCR

-
- 02 Diaphorina citri, el psílido asiático de los cítricos, es un hemíptero de la familia Psyllidae, transmisor de bacterias del género Candidatus Liberibacter spp., causantes del Huanglongbing de los cítricos. Es imprescindible el control del vector para evitar la enfermedad. Autor: Mike Lewis/UCR

-
- 03 Diaphorina citri. Fuente: USDA’s Lab at Ft. Detrick, Maryland. Autor: Mike Lewis/UCR
-
- 04 Ninfas de Diaphorina citri. Autor: Mike Lewis/UCR

.
.
En otras regiones citrícolas como África, se ha identificado al psílido Trioza erytreae Del Guercio (Hemiptera: Triozidae) como insecto vector de Ca. Liberibacter (Candidatus Liberibacter africanus) (Aubert, 1987; Aidoo, 2020). Recientemente, se ha reportado al psílido Diaphorina citri Kuwayama (Hemiptera: Liviidae) en la República de Benin, África occidental (Sétamou et al., 2023).
.
-
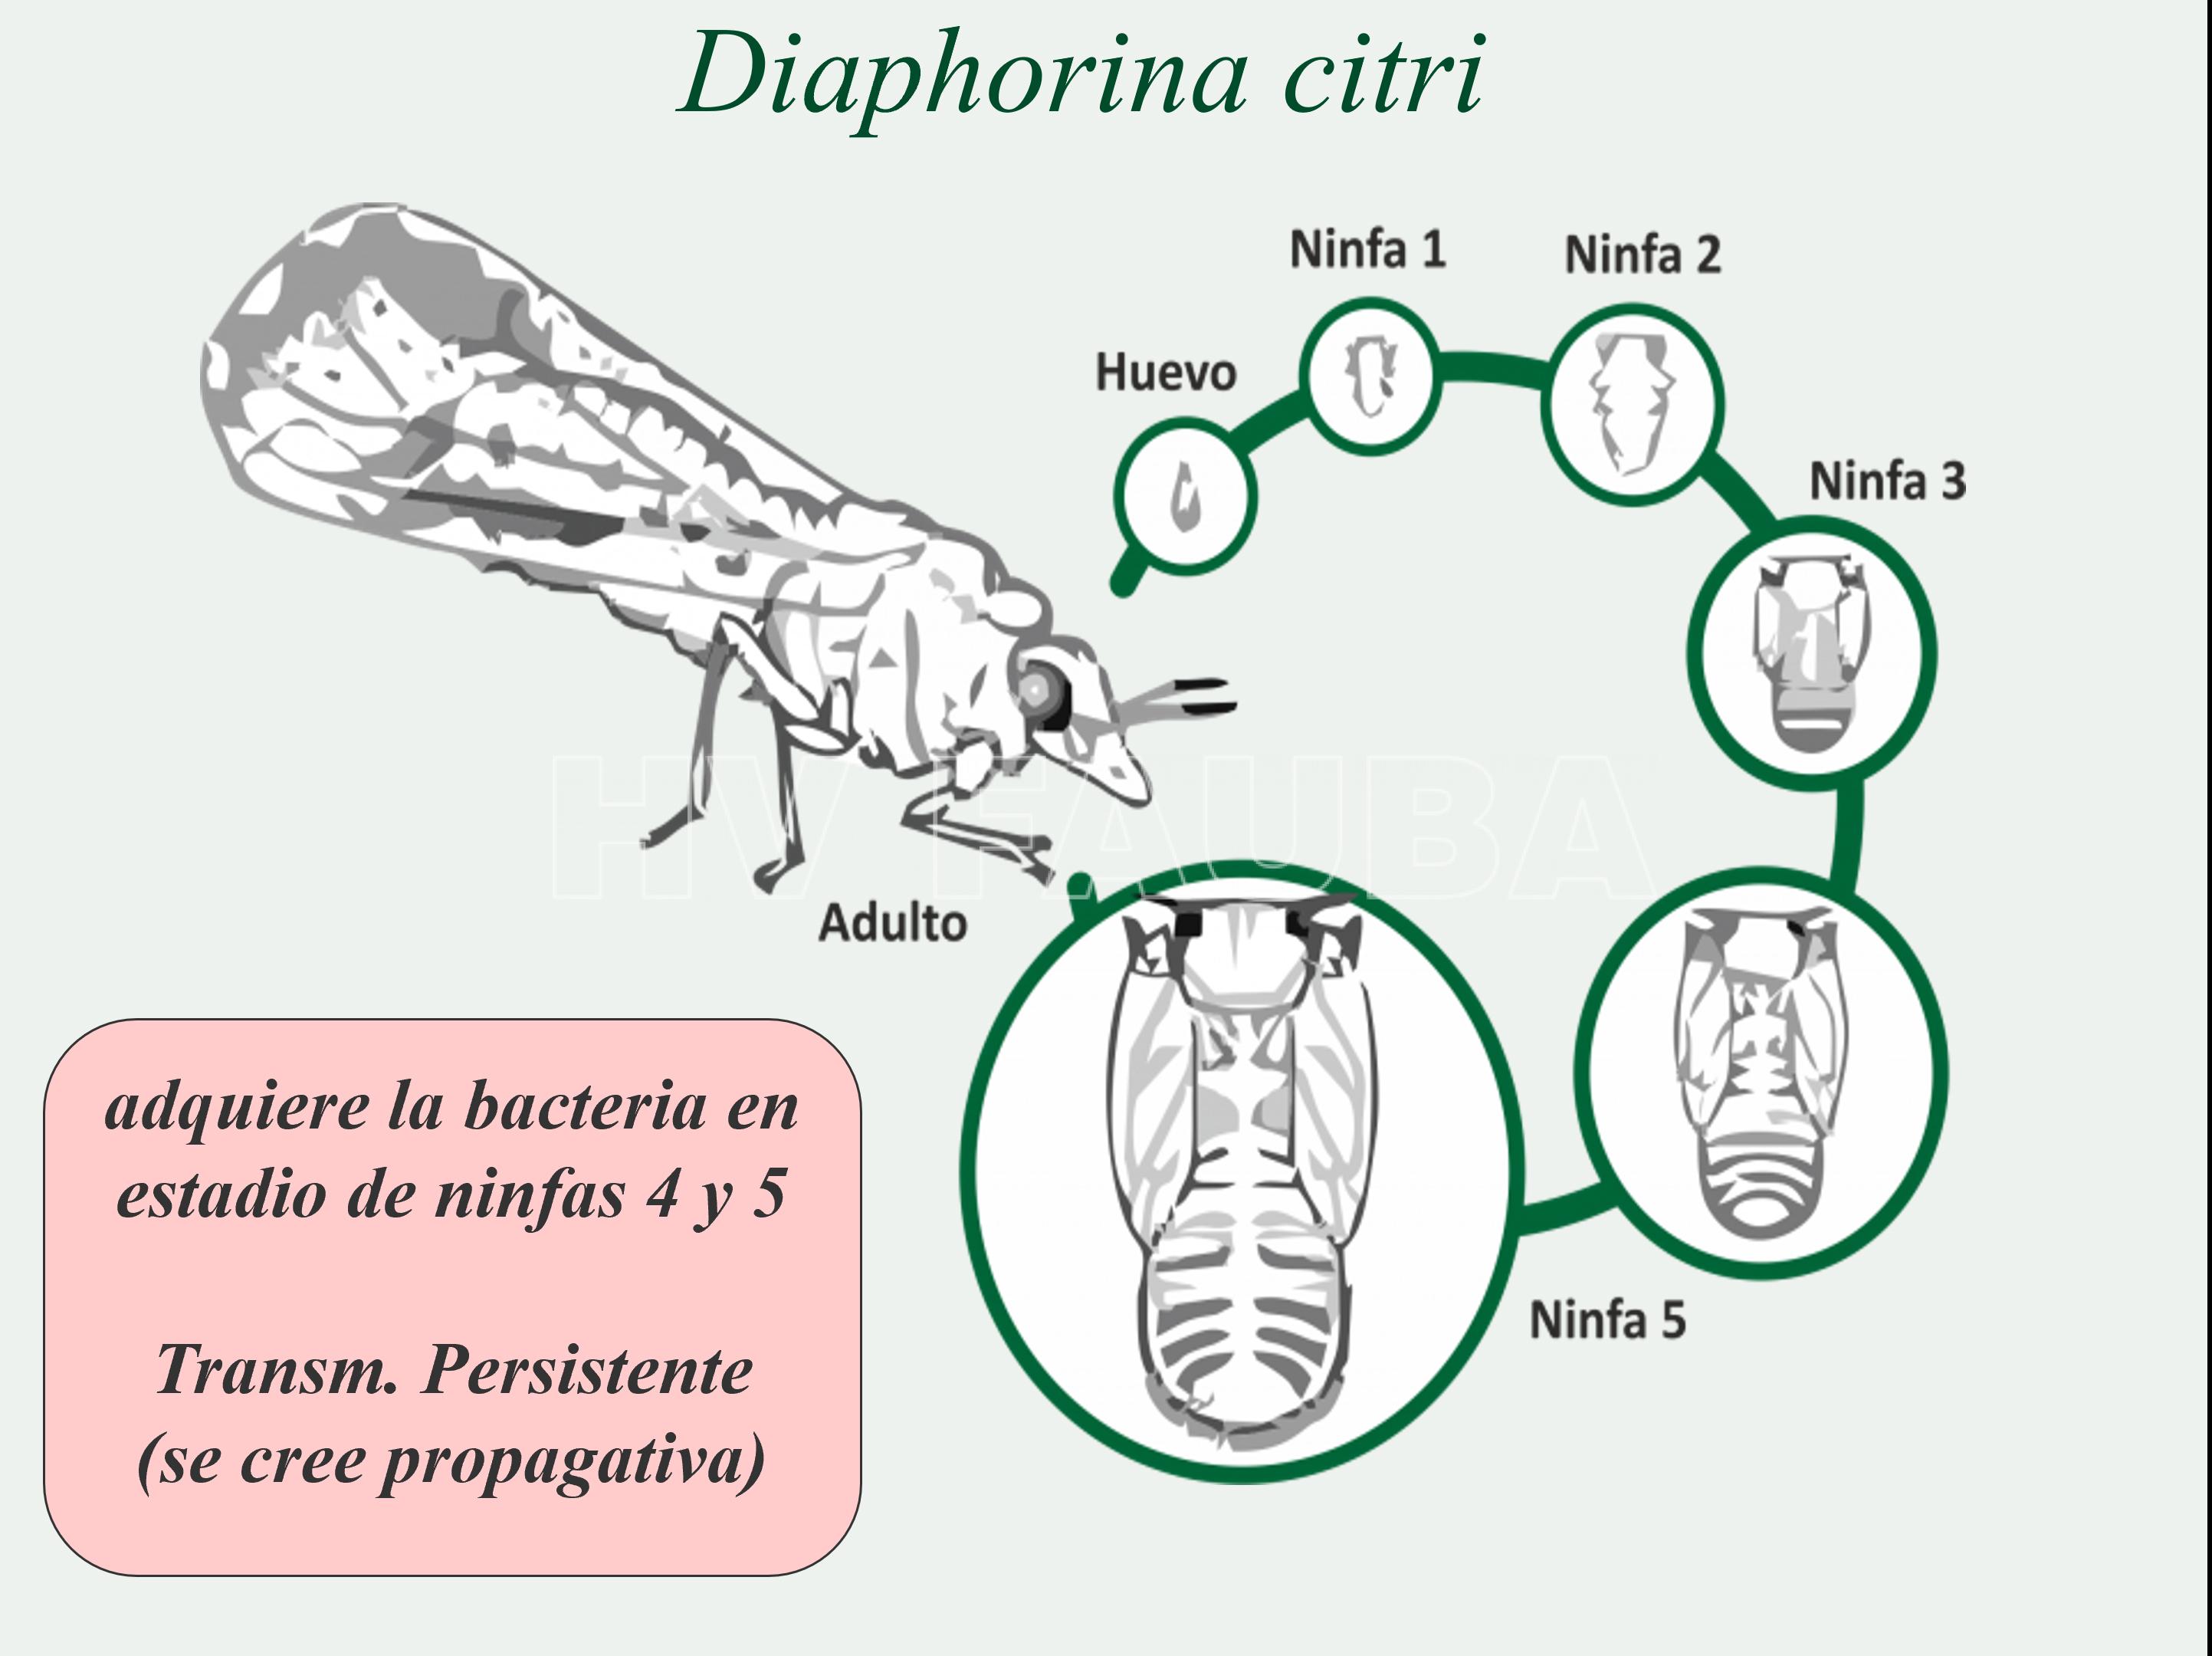
- Ciclo del psílido vector, Diaphorina citri, conocida como psílido asiático de los cítricos.
.
.
-
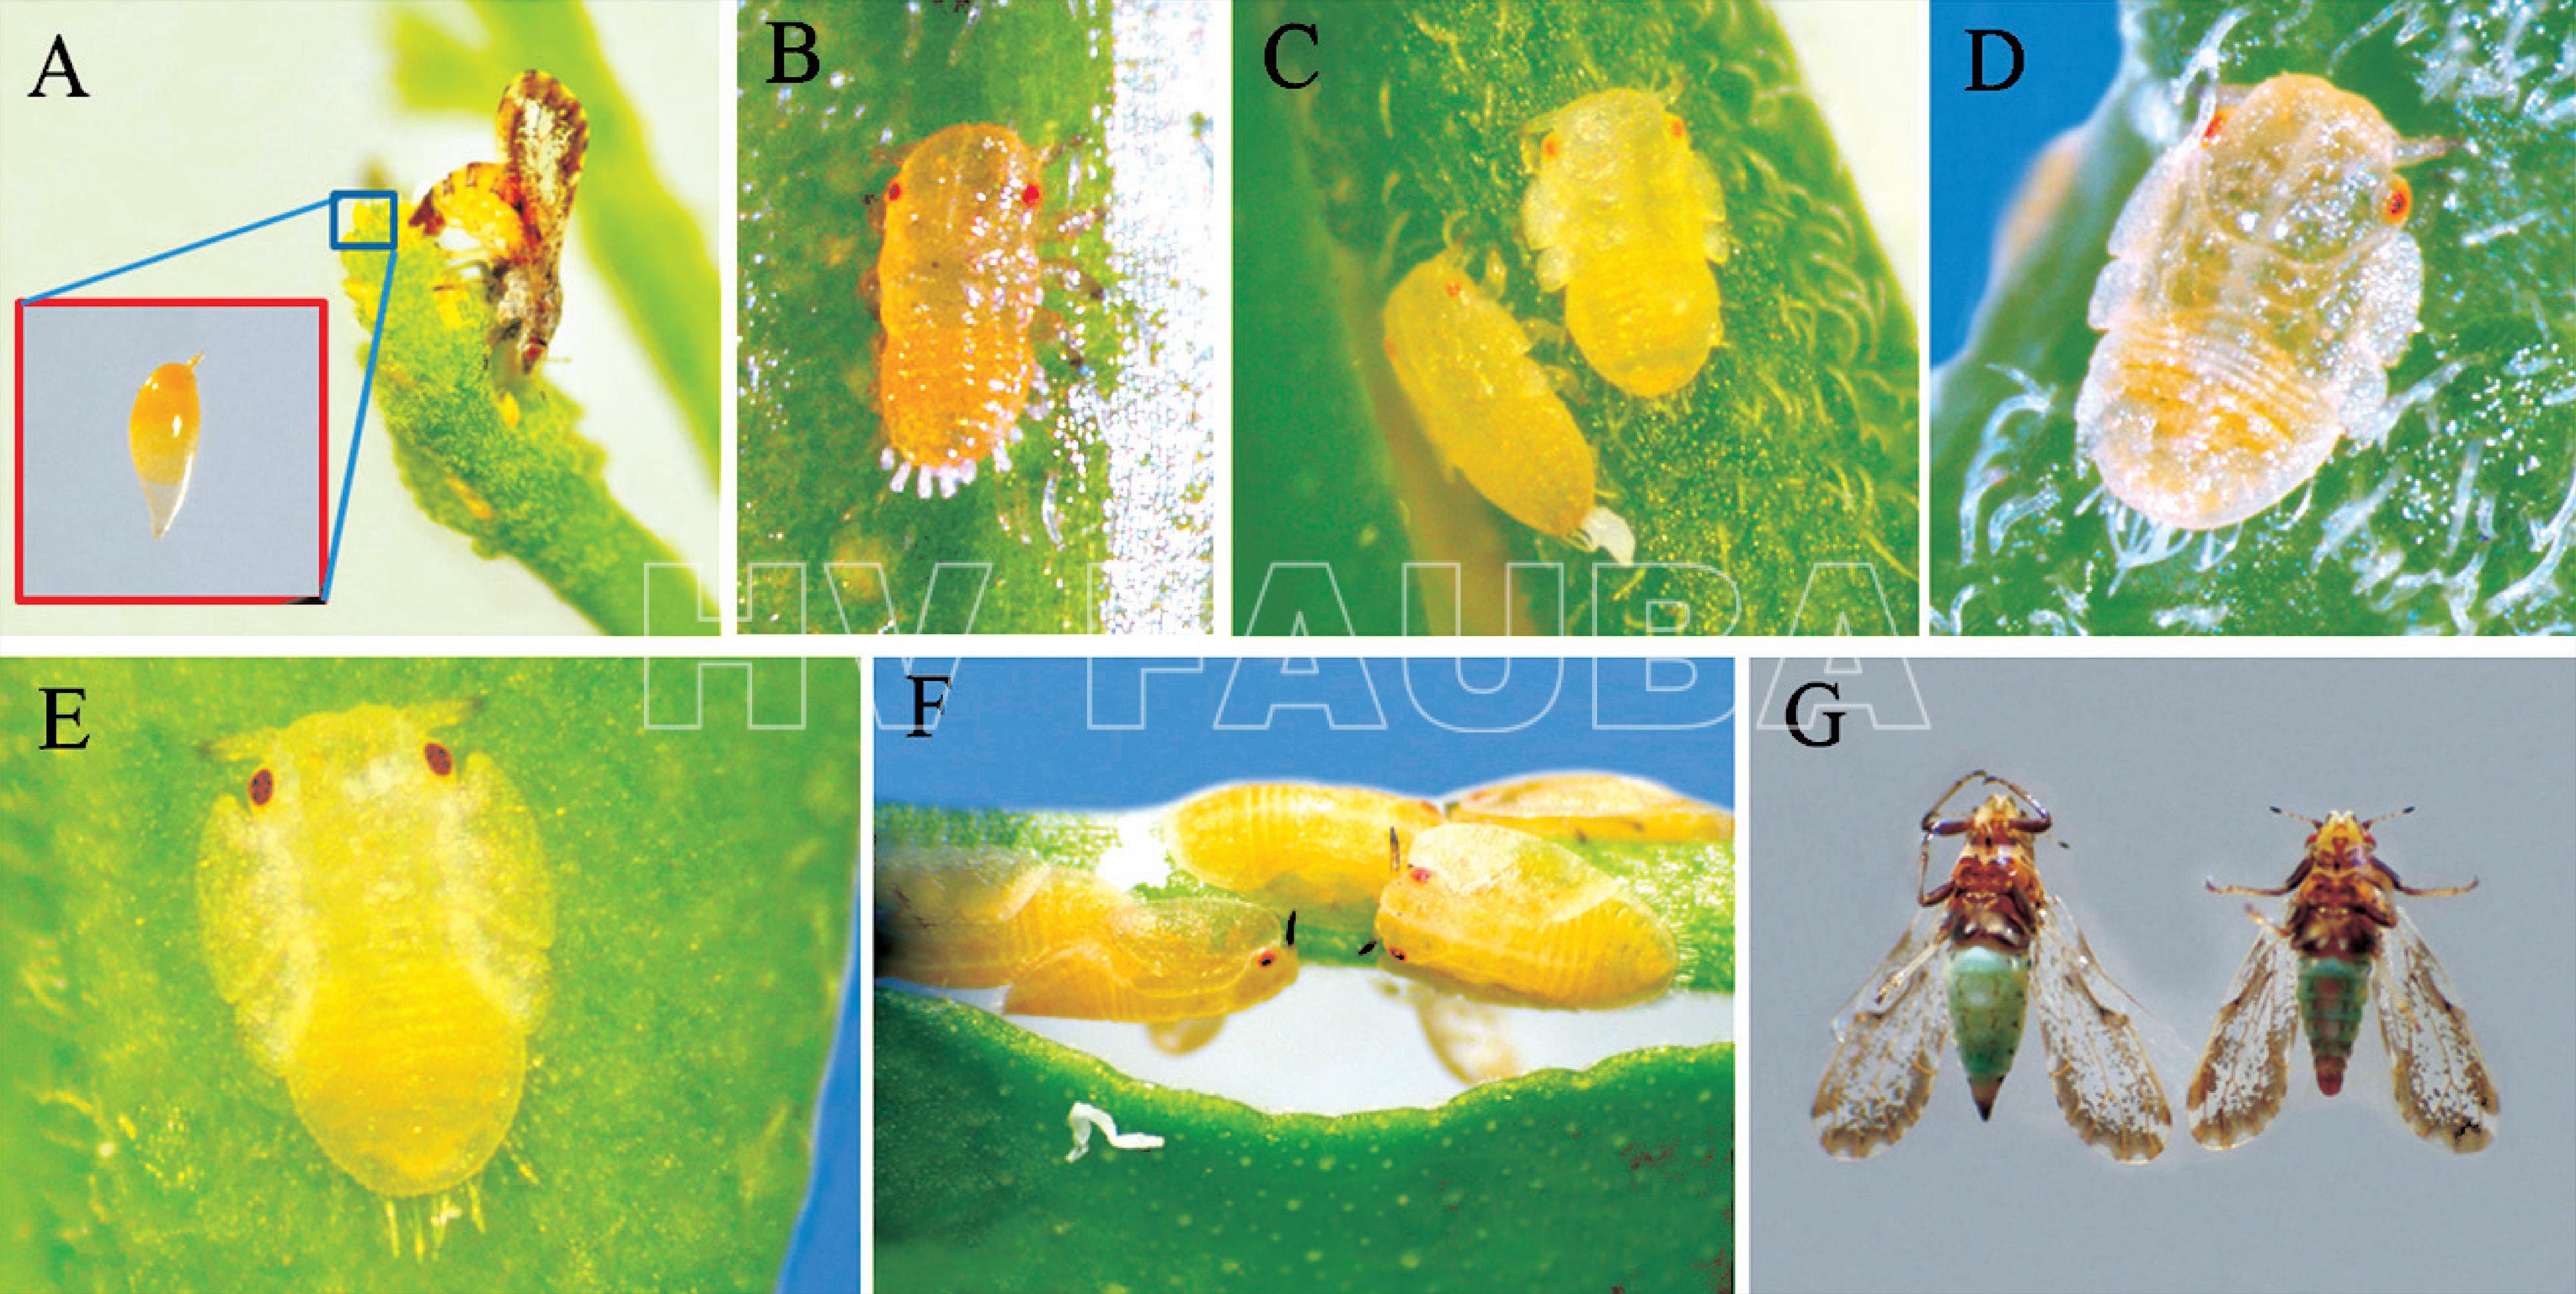
- Morfología de los estados de desarrollo de Diaphorina citri. (A) Hembra ovipositando sobre un brote de mirto. Huevo: primer plano. (B) Ninfa I. (C) Ninfa II. (D) Ninfa III. (E) Ninfa IV. Notar que los esbozos alares no sobrepasan los ojos. (F) Ninfa V. Notar que los esbozos alares sobrepasan los ojos. (G) Adultos de D. citri. Izquierda. Hembra. Derecha. Macho. Notar las diferencias en el ápice del abdomen. Autor: García et al., 2016
.
.
Hospedantes alternativos
Entre los hospedantes más importantes, la Murraya paniculata (mirto o jazmín árabe) tiene una gran difusión en Argentina. Esta planta es utilizada en las zonas citrícolas del norte de Argentina como planta ornamental. Diaphorina citri se ve atraído por la coloración amarilla de las hojas de Murraya paniculata, de las cuales se alimenta. Si esta planta se encuentra infectada con la bacteria, el insecto la adquiere y luego, al alimentarse de plantas cítricas sanas, transmite la enfermedad.
.
-
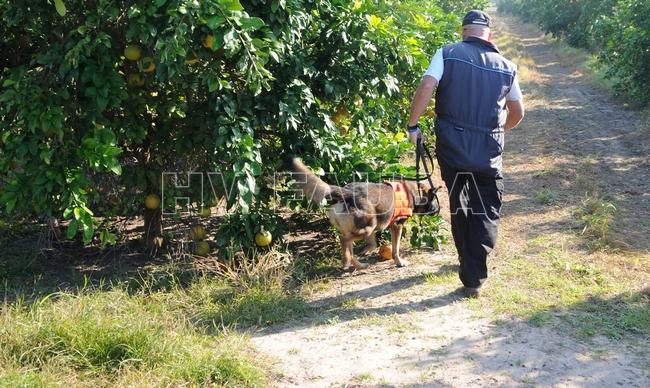
- En EE.UU., el USDA ha entrenado perros para detectar el HLB en Florida. Autor: USDA. Ver: Gottward et al., 2020 (https://www.pnas.org/content/117/7/3492)
.
.
Epidemiología
Desde el punto de vista epidemiológico, el HLB es considerada una enfermedad poliética.
El período de incubación del HLB puede ser bastante variable; de unos meses a uno o más años (Gottwald, 2010). Los árboles que expresan el inicio de la manifestación sintomática al mismo tiempo pueden haber sido infectados en diferentes momentos en el pasado. Datos de grandes extensiones citrícolas comerciales en Florida, EE. UU. en las que se ha llevado a cabo un manejo extensivo de psílidos y programas de remoción de árboles enfermos de HLB (erradicación) han indicado que se requieren de 2 a 2.5 años para reducir la acumulación de infecciones asintomáticas antes de que estas estrategias de manejo comiencen a mostrar algún efecto (M. Irey, datos no publicados ). Esta es una evidencia indirecta pero contundente de que la enfermedad posee un período de incubación de entre 1 a 2.5 años en montes frutales comerciales establecidos de 7 a 10 años de antigüedad. Los montes de cítricos más jóvenes manifestarán síntomas dentro de los 6 a 12 meses posteriores a la siembra, lo que indica que los árboles jóvenes de rápido crecimiento, mucho más pequeños en volumen de copa, tienen un período de incubación más corto (Gottwald, 2010). Observaciones en árboles de más de 10 años de edad indican un desarrollo de síntomas aún más lento. Estas observaciones, aunque no son cuantitativas, tomadas en conjunto permiten estimar una ventana de incubación temporal muy variable que puede variar desde unos pocos meses hasta varios años.
En las enfermedades virales o en aquellas causadas por bacterias fastidiosas, como el HLB, que no poseen signo y tienen características epidemiológicas similares, en las que interviene un insecto vector en la transmisión del agente causal, el concepto de latencia es diferente al de otros patosistemas en los que hay expresión de signos, como por ejemplo en aquellas enfermedades causadas por hongos, pseudohongos y bacterias. En el primer caso, el período de incubación y la latencia son dos procesos temporales concurrentes y relacionados: ambos comienzan en la infección. La latencia finaliza cuando comienza la infectividad y generalmente es seguida por el final del período de incubación, cuando la planta se vuelve sintomática. La latencia del HLB también es muy variable y aparentemente se ve muy afectada por la edad de los árboles y otros factores. Es probable que un árbol asintomático haya actuado como fuente de infección para muchos otros árboles, pero los síntomas de la enfermedad eran visualmente subclínicos en los árboles fuente (infectivos) en ese momento. De acuerdo con la sensibilidad de detección de los test de qPCR actualmente usados, la infección no se puede detectar inmediatamente después de la transmisión del vector y durante algún tiempo.
.
.
Manejo Integrado de la enfermedad
Actualmente no existe un tratamiento curativo comercialmente validado capaz de erradicar Candidatus Liberibacter de un árbol infectado y restablecerlo de manera permanente a un estado sanitario libre de HLB. Por este motivo, el manejo de la enfermedad se basa fundamentalmente en prevenir nuevas infecciones, disminuir las fuentes de inóculo y reducir las poblaciones de los insectos vectores. Históricamente, la estrategia más eficaz se sustenta en tres componentes principales:
(i) utilización de material de propagación certificado y libre de HLB,
(ii) detección temprana y eliminación de plantas infectadas y
(iii) manejo de Diaphorina citri.
La experiencia comparativa de regiones citrícolas como São Paulo (Brasil) y Florida (Estados Unidos) demuestra que la eficacia de estas medidas depende especialmente de su implementación temprana, sostenida y coordinada a escala regional (Graham et al., 2024).
El uso de plantines producidos bajo condiciones protegidas y con certificación sanitaria es esencial para evitar la introducción del patógeno en nuevas plantaciones. Una vez establecido un foco, la detección y eliminación rápida de plantas infectadas reduce las fuentes desde las cuales los psílidos pueden adquirir la bacteria y transmitirla posteriormente a plantas sanas. Sin embargo, dado que los árboles pueden permanecer infectados durante un período antes de desarrollar síntomas evidentes y que D. citri puede desplazarse entre establecimientos, las medidas aplicadas exclusivamente a nivel de una quinta o empresa individual pueden resultar insuficientes. En consecuencia, actualmente se enfatiza el concepto de manejo regional coordinado (area-wide management), que integra monitoreo, eliminación de fuentes de inóculo y manejo simultáneo del vector en áreas productivas amplias y también en hospedantes presentes en zonas urbanas o periurbanas. Los programas regionales coordinados han contribuido a disminuir las poblaciones del vector y a retrasar la dispersión del HLB en diferentes regiones citrícolas (Pérez-Hedo et al., 2025).
El manejo de D. citri constituye uno de los componentes centrales de la estrategia. Los insecticidas pueden reducir rápidamente las poblaciones del vector y, por lo tanto, disminuir la probabilidad de nuevas transmisiones, pero su utilización intensiva y repetida ejerce una elevada presión de selección y puede favorecer la evolución de resistencia a insecticidas. Por ello, el control químico debe integrarse con monitoreo de poblaciones, oportunidad de aplicación, rotación de insecticidas con diferentes modos de acción y conservación de enemigos naturales. El manejo integrado permite además reducir los efectos adversos de tratamientos reiterados sobre organismos benéficos. Las revisiones recientes destacan que el control de D. citri debe evolucionar desde programas basados exclusivamente en aplicaciones calendarizadas hacia estrategias de manejo integrado del vector (Pérez-Hedo et al., 2025).
El control biológico constituye un complemento importante. El parasitoide Tamarixia radiata es uno de los enemigos naturales más utilizados contra D. citri y ha permitido reducir significativamente sus poblaciones en determinadas regiones. Su utilización resulta especialmente valiosa dentro de programas de manejo integrado y de estrategias regionales coordinadas. También se investigan hongos entomopatógenos, entre ellos Beauveria bassiana, Metarhizium anisopliae, Hirsutella citriformis e Isaria spp., aunque su eficacia puede depender considerablemente de las condiciones ambientales y del sistema productivo (Pérez-Hedo et al., 2025).
Las estrategias de exclusión física del vector pueden reducir marcadamente la exposición de los cítricos a D. citri. Los sistemas denominados CUPS (Citrus Under Protective Screen) consisten en producir cítricos dentro de estructuras cubiertas con mallas capaces de excluir al psílido. Para plantas jóvenes también se utilizan cubiertas protectoras individuales (IPCs, Individual Protective Covers), que impiden el acceso del vector a las nuevas brotaciones durante los primeros años posteriores a la plantación. Estos sistemas pueden retrasar considerablemente la infección y favorecer el establecimiento inicial de árboles sanos, aunque sus costos, requerimientos de manejo y factibilidad limitan su aplicación a determinados sistemas productivos (Pérez-Hedo et al., 2025).
En áreas donde el HLB ya se encuentra ampliamente establecido, además de disminuir la presión de infección, se busca mantener la productividad y prolongar la vida útil de los árboles afectados mediante un adecuado manejo nutricional, hídrico y del sistema radical. Estas prácticas pueden mejorar el vigor y rendimiento de plantas enfermas, pero no eliminan la bacteria ni impiden que el árbol continúe actuando como fuente de inóculo. Por esta razón, deben diferenciarse claramente las prácticas destinadas a mitigar los efectos fisiológicos de la enfermedad de aquellas dirigidas a disminuir su incidencia y propagación. Las estrategias de manejo más recientes combinan métodos culturales, químicos, biológicos, físicos y biotecnológicos, debido a que ninguna herramienta utilizada aisladamente permite actualmente un control satisfactorio del HLB (Younas et al., 2025).
Finalmente, diversas estrategias de resistencia genética y manipulación de las interacciones moleculares planta-patógeno se encuentran en desarrollo. Un avance relevante fue la identificación del circuito regulatorio PUB21–MYC2, relacionado con las defensas mediadas por jasmonato. La MYC2 es una proteína relacionada con la respuesta inmune, que es degradada por la ubiquitina ligasa E3 PUB21. Zhao et al. (2025) demostraron que la estabilización de MYC2 puede conferir resistencia al HLB y desarrollaron pequeños péptidos antiproteólisis capaces de interferir con PUB21; uno de ellos, APP3-14, redujo la enfermedad en ensayos de invernadero y campo. Estos resultados, junto con estrategias de edición génica y modificación de genes de susceptibilidad, representan alternativas promisorias para el desarrollo futuro de cultivares o tratamientos resistentes al HLB, aunque todavía deben considerarse tecnologías experimentales y no sustitutos de las medidas fitosanitarias actualmente disponibles.
En Argentina, las medidas de manejo deben aplicarse de acuerdo con la normativa vigente del SENASA. La Resolución 596/2025 establece el Plan de Medidas Integradas para el Manejo del HLB, basado precisamente en monitoreo sistemático de la enfermedad y de D. citri, diagnóstico, control del vector y erradicación rápida de plantas con diagnóstico positivo en las áreas alcanzadas por el plan.
.
Resumen del manejo integrado del HLB
El HLB es una enfermedad sin cura en la actualidad.
Todos los cultivares y especies comerciales de cítricos son susceptibles al HLB. Las plantas, una vez infectadas, no se recuperan y se tornan comercialmente improductivas.
La base del programa de manejo debe ser la prevención (Pazolini et al., 2021).
La Base del Manejo del HLB en Argentina se centra en el Manejo Legal, lo que permite medidas de exclusión, erradicación, básicamente en conjunto con medidas de manejo cultural, control químico, biológico, etc. Para prevenir o evitar la diseminación de esta enfermedad, se deben implementar y gestionar en forma combinada las siguientes prácticas de manejo:
* MANEJO LEGAL: en Argentina se encuentra vigente el Programa Nacional de Prevención del Huanglongbing. Entre los diferentes objetivos y medidas implementadas por el PNPH se encuentran:
** No ingresar al país en forma ilegal material de propagación vegetativa de cítricos (yemas, injertos o plantines)
** Producción de plantas sanas en vivero (certificación de plantas cítricas, producidas solo bajo invernadero, no emplear plantas de origen desconocido)
** Monitorear plantas y poblaciones del vector, y eventual herradicación o control.
** Erradicación de hospedantes alternativos (ej. Murraya paniculata), el cual está prohibido por SENASA (Res. 447/2009).
** Control de traslado de fruta entre provincias (DTV-e)
* El artículo 19 de la Disposición DNPV N° 4/13 SENASA establece que todo productor de fruta tiene la obligatoriedad de demostrar con la Guía de Sanidad para el Tránsito de plantas y/o sus partes el origen del material de propagación plantado.
.
* Uso de plantas certificadas libre de enfermedad (producidas y certificadas en invernadero, con malla antiáfido y doble puerta de entrada, ambas con pediluvios para la desinfección del calzado de acuerdo con la legislación vigente, Res. SENASA 930/2009).
* Monitoreo del vector (por golpeteo en ramas, por trampas pegajosas, por inspección visual).
* Control del insecto vector (en vivero y monte frutal), tanto químico como biológico (ej. Tamarixia radiata). En el caso de control químico se debe prestar especial atenciaón a la tecnología de aplicación para lograr una correcta distribución del insecticida en el arbol (Menger et al., 2021; Rehberg et al., 2021).
* Detección temprana (PCR real time) y Erradicación de plantas enfermas. Actualmente se está desarrollando una técnica de detección molecular más sensible basada en la técnica Cas12a (Wheatley et al., 2021).
* Recientemente se han identificado especies de la subtribu Citrinae totalmente resistentes (Eremocitrus glauca y Papua / Nueva Guinea Microcitrus), así como sus híbridos y aquellas con Citrus, por lo que podrían ser una fuente de resistencia contra Las en programas de reproducción o intentar usarlos directamente como portainjertos cítricos resistentes a Las (Alves et al., 2021).
* La poda no elimina la bacteria.
.
.
-
- Programa PROCITRUS INTA para para obtener variedades comerciales certificadas de cítricos que son libres de enfermedades y tienen excelente calidad genética. Esto permite que el productor puede contar con mayores rendimientos por hectárea y extender la vida útil de las plantas. FUENTE: INTA
.
.
-
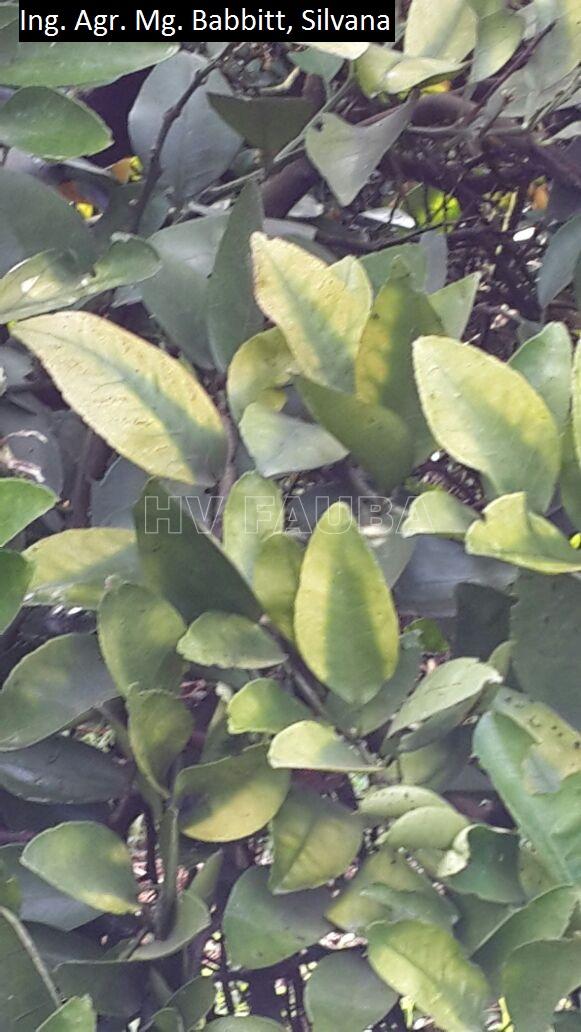
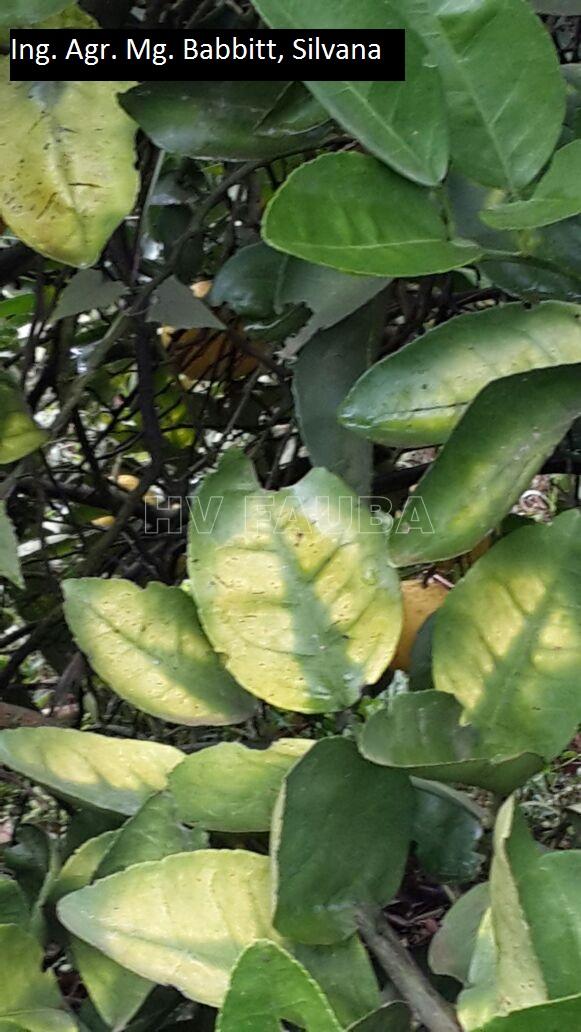
- 15 Deficiencia de Magnesio
-
- 16 Deficiencia de Magnesio
-
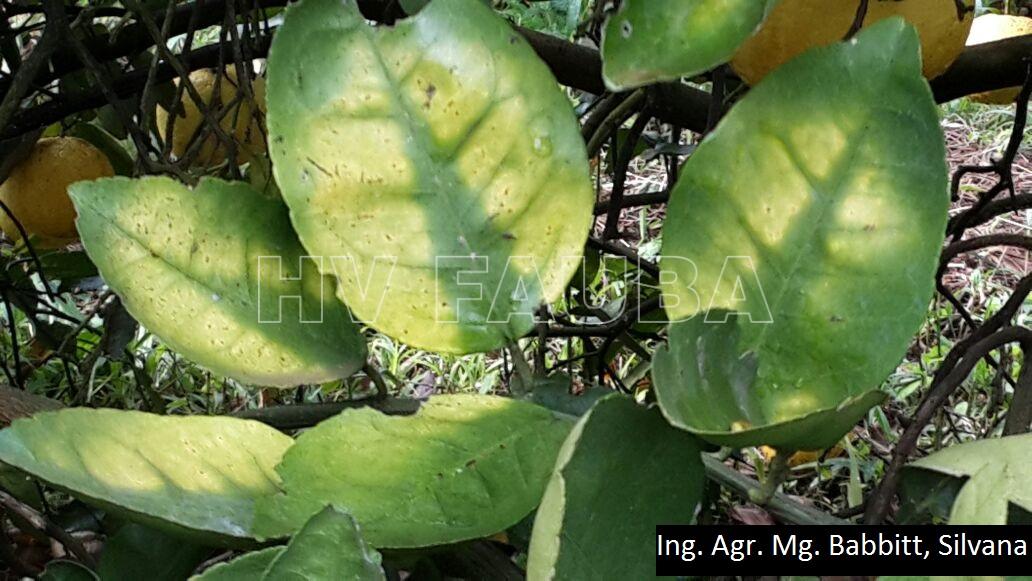
- 17 Deficiencia de Magnesio
-
- 18 Deficiencia de Zinc
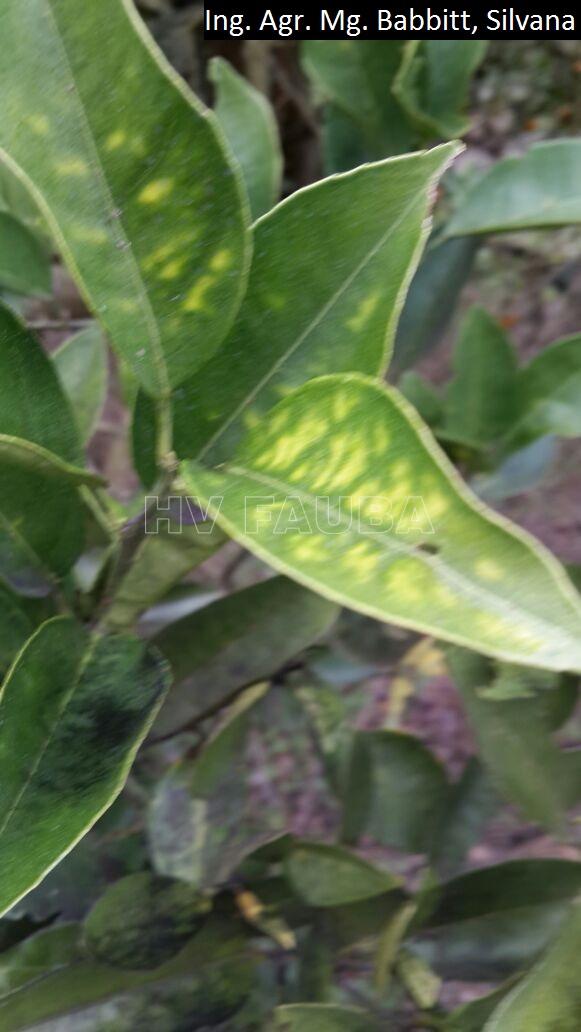
-
- 19 Deficiencia de Zinc

-
- 20 Deficiencia de Zinc
-
- 21 Comparación síntomas de HLB y Deficiencia de Zinc
-
- 22 Comparación síntomas de HLB y Deficiencia de Zinc
-
- 23 Comparación síntomas de HLB y Deficiencia de Zinc
-
- 24 Comparación síntomas de HLB y Deficiencia de Zinc
-
- 25 Comparación síntomas de HLB y Deficiencia de Zinc
.
.
SENASA
HLB – Programa Nacional de Prevención del Huanglongbing. SENASA
HLB – Programa Nacional de Prevención del Huanglongbing. Ministerio de Agroindustria
HLB – Programa Nacional de Prevención del Huanglongbing. Fiscalización y control sanitario
HLB – ¿Qué es el HLB? M. de Agroindustria > Sec. Agricultura, Ganadería y Pesca > Subse. Agricultura > Dir. Nac. de Fruticultura y Horticultura
Consultas y Denuncias: alertahlb@senasa.gov.ar / 0800-999-2386
.
Análisis epidemiológico a nivel nacional
Análisis epidemiológico por provincia
.
-

- Condición Fitosanitaria del HLB en la República Argentina, https://www.argentina.gob.ar/senasa/micrositios/hlb
.
-
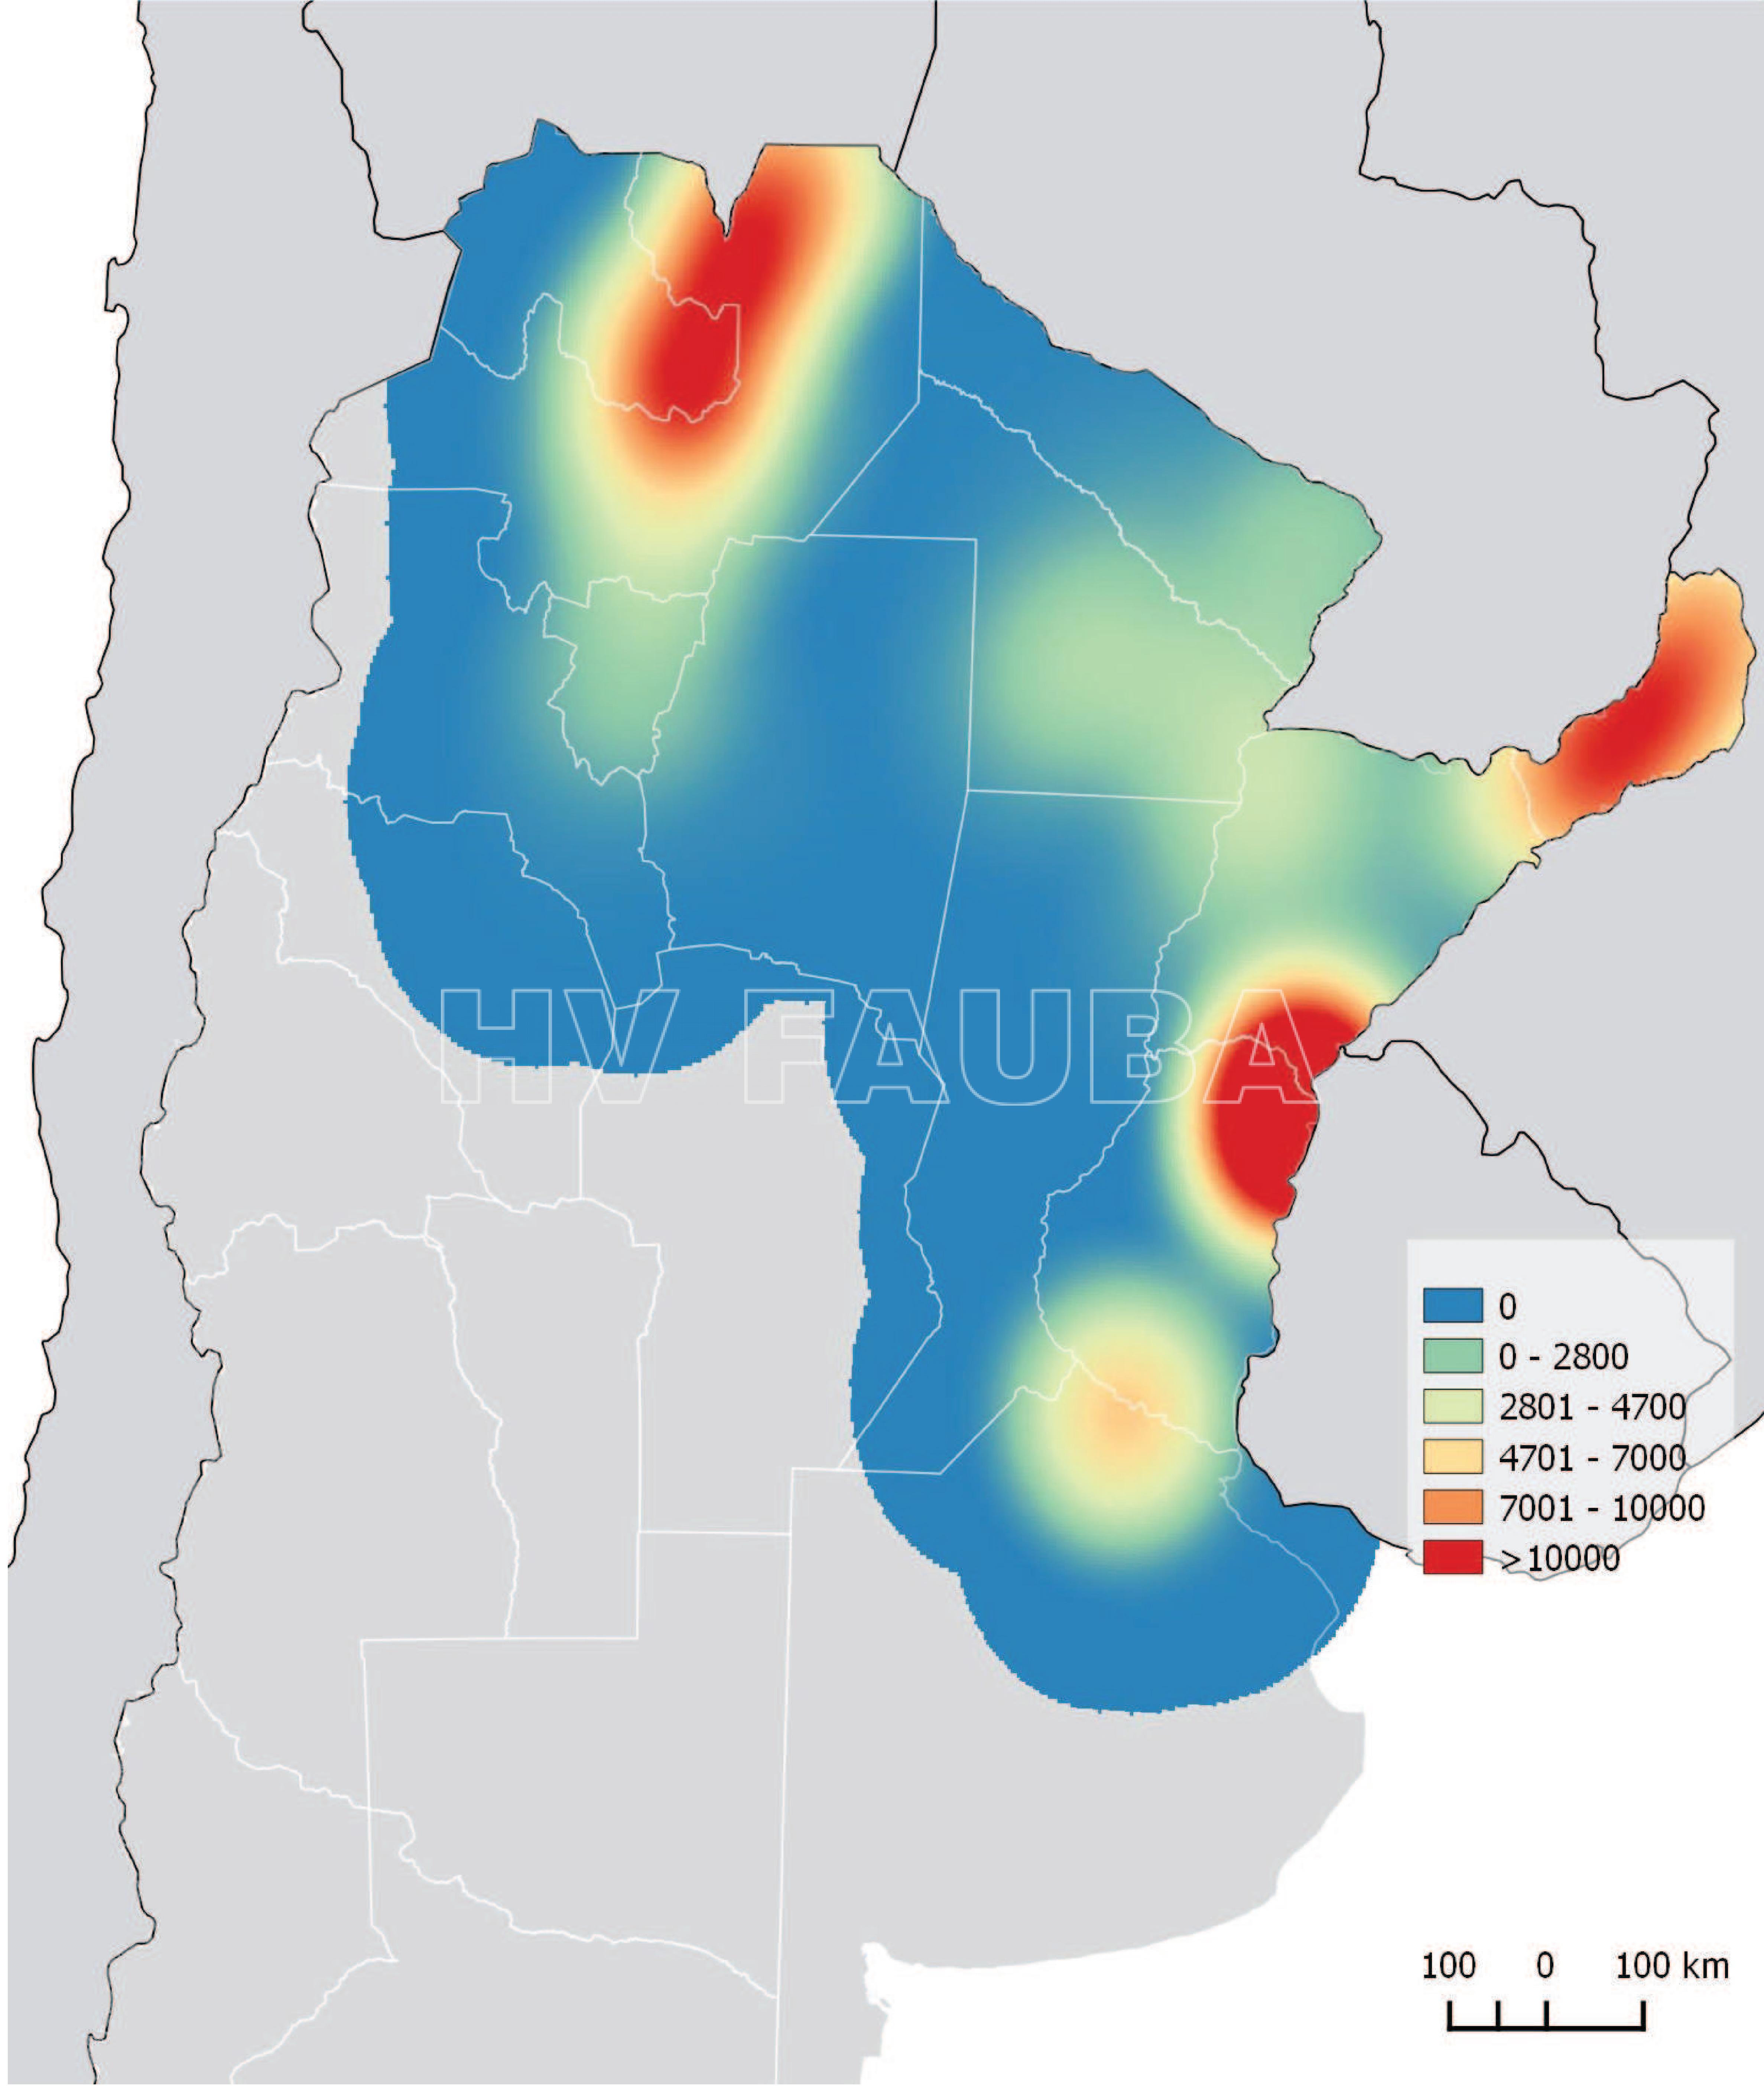
- Intensidad de monitoreo de HLB a Octubre 2019. Fuente: Datos Programa Nacional de Prevención del Huanglongbing (PNPHLB)
-
- Distribución de las detecciones de HLB a Octubre 2019. FUENTE: Datos Programa Nacional de Prevención del Huanglongbing (PNPHLB)
-
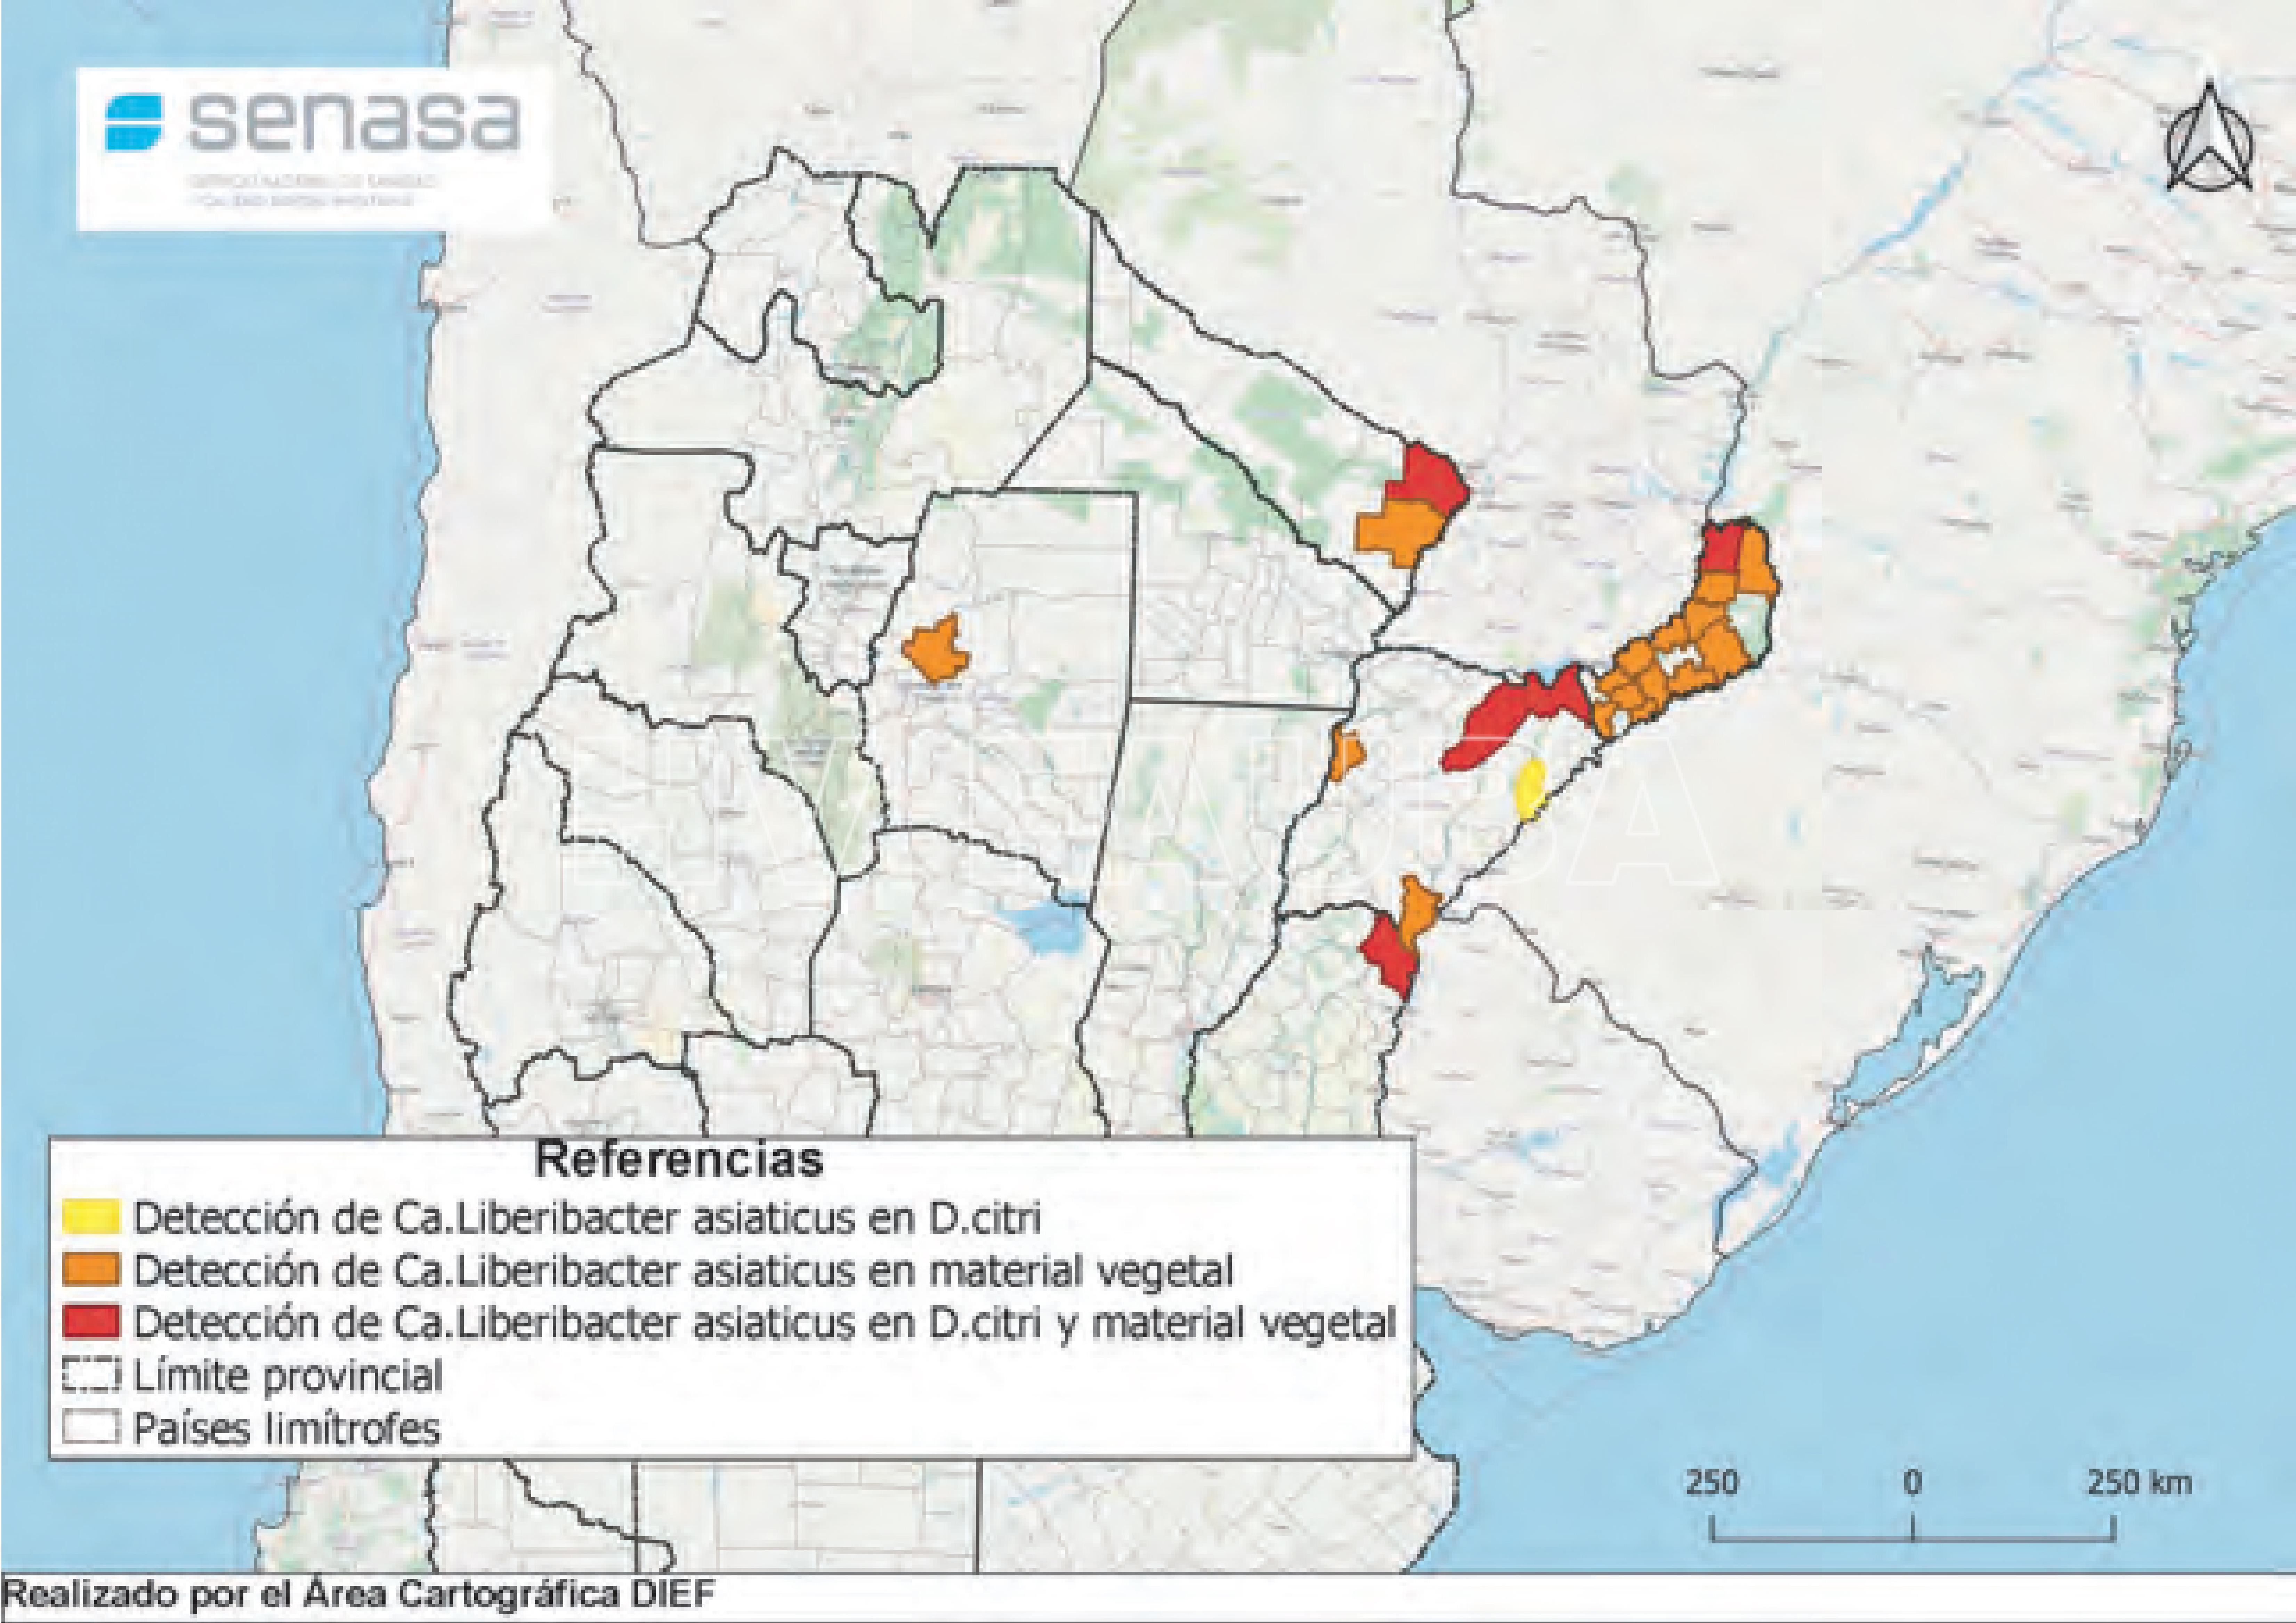
- Status de detección de HLB a nivel nacional en febrero de 2021. Fuente: PNPHLB
-
- Status de detección de HLB a nivel nacional en agosto de 2021. Fuente: PNPHLB

-
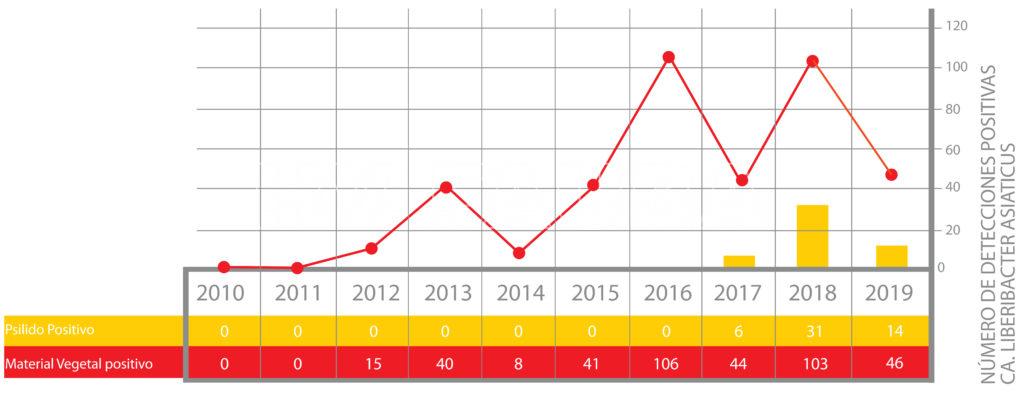
- Evolución del número de detecciones positivas de HLB en Argentina a Octubre 2019. FUENTE: Datos Programa Nacional de Prevención del Huanglongbing (PNPHLB)
-
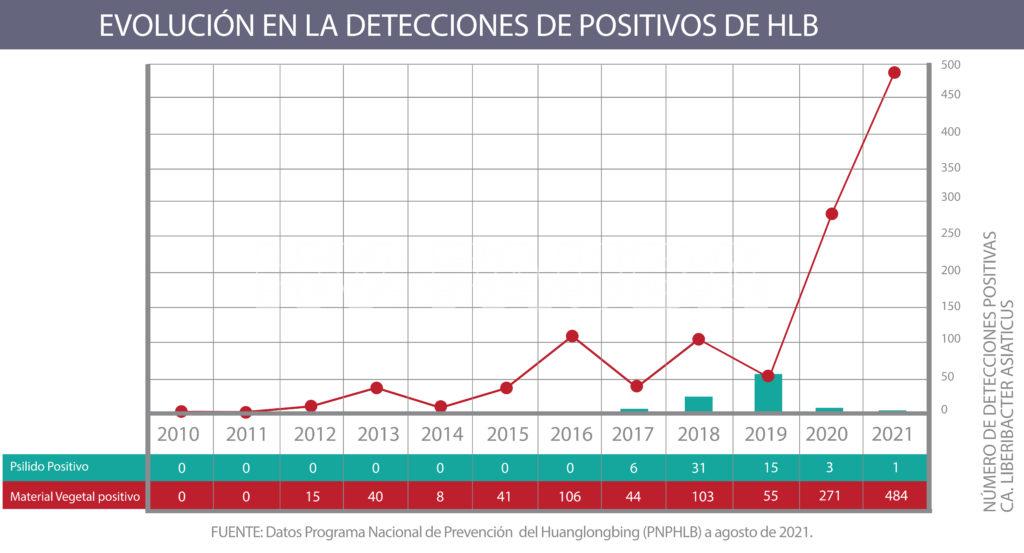
- Evolución del número de detecciones positivas de HLB en Argentina a Agosto 2021. FUENTE: Datos Programa Nacional de Prevención del Huanglongbing (PNPHLB)

.
.
Normativa Vigente
En Argentina, el HLB está regulado en el marco del Programa Nacional para la Prevención de la Enfermedad HLB, creado por la Ley Nº 26.888. Esta norma establece la obligatoriedad de las acciones de prevención, vigilancia y control en las provincias con producción comercial de cítricos, declara de denuncia obligatoria la presencia de sintomatología sospechosa y reconoce a Diaphorina citri como el principal insecto vector involucrado en la epidemiología de la enfermedad. El SENASA es la autoridad responsable de reglamentar y ejecutar el Programa Nacional.
La Resolución SENASA Nº 875/2020, junto con sus modificatorias, constituye actualmente una de las normas centrales para la definición territorial del riesgo fitosanitario. La normativa clasifica las diferentes regiones del país en función de la presencia o ausencia del HLB y de D. citri, distinguiendo áreas libres de HLB y del vector, áreas libres de HLB con presencia del vector, áreas bajo cuarentena y áreas protegidas de HLB. Asimismo, establece medidas de mitigación de riesgo para el movimiento de material vegetal y otros artículos reglamentados. Debido a que esta clasificación puede modificarse en función de los resultados de la vigilancia oficial, la condición fitosanitaria de cada región debe consultarse siempre en la versión actualizada publicada por SENASA.
En 2025, la Disposición DNPV Nº 2/2025 actualizó la distribución de las áreas definidas por la Resolución 875/2020. Entre otros cambios, estableció como áreas bajo cuarentena a los departamentos Ituzaingó, Monte Caseros, General Paz, Curuzú Cuatiá y San Martín, en Corrientes; Federación, en Entre Ríos; la mayor parte de Misiones, con excepción del departamento Concepción; y General Obligado, en Santa Fe. La misma disposición actualizó también las áreas consideradas libres de HLB pero con presencia de D. citri.
También en 2025 se aprobó, mediante la Resolución SENASA Nº 596/2025, el Plan de Medidas Integradas para el Manejo del Huanglongbing (HLB). Este plan actualizó el esquema de intervención en establecimientos comerciales ubicados en áreas bajo cuarentena y se basa en tres componentes epidemiológicos fundamentales: detección temprana y erradicación de plantas infectadas, control de las poblaciones de D. citri y utilización de material de propagación sano. La norma establece además procedimientos de monitoreo y análisis de laboratorio, y dispone que los establecimientos comprendidos pueden quedar exentos de las obligaciones del plan cuando transcurran tres años consecutivos sin nuevos diagnósticos oficiales positivos. La Resolución 596/2025 derogó las Resoluciones SENASA 524/2018 y 545/2022.
El material de propagación cítrico constituye un componente especialmente regulado debido a su capacidad para dispersar el HLB a largas distancias. La Resolución SENASA N.º 930/2009 estableció requisitos de producción bajo cobertura y malla antiinsectos en las áreas de riesgo, mientras que la Resolución Nº 592/2025 actualizó el ámbito territorial de aplicación de estas exigencias. A partir de 2026, la Resolución SENASA Nº 64/2026 aprobó además un nuevo marco normativo fitosanitario para la producción, multiplicación y comercialización de material de propagación vegetal. Para cítricos, la norma mantiene la obligación de cumplir con los requisitos específicos de producción de material cítrico y de denunciar la presencia de síntomas sospechosos de HLB o de D. citri.
Un hospedante de particular importancia epidemiológica es el mirto, Murraya paniculata, ampliamente utilizado como ornamental y altamente favorable para el desarrollo de D. citri. La producción, plantación, comercialización y transporte de esta especie están prohibidos en todo el territorio nacional por la Resolución SENASA 875/2020. Esta prohibición continúa vigente y es reafirmada por el marco normativo establecido en la Resolución 64/2026.
En junio de 2025 se produjo además la primera detección oficial de D. citri en San Pedro, provincia de Buenos Aires, en una planta de traspatio. Como consecuencia, la Resolución SENASA Nº 593/2025 declaró una alerta fitosanitaria para los partidos de San Pedro y Baradero hasta el 31 de julio de 2026, con intensificación de las acciones de vigilancia, control y prevención. La detección aislada no implicó en ese momento la pérdida automática del estatus oficial de área libre, y durante 2026 SENASA continuó realizando monitoreos intensivos en áreas urbanas, rurales, viveros y montes comerciales.
La normativa argentina establece asimismo que la detección de plantas con síntomas sospechosos de HLB o del insecto vector debe ser notificada al SENASA. La vigilancia oficial, el diagnóstico temprano, el control del movimiento de material vegetal y la actualización permanente de las áreas fitosanitarias constituyen herramientas centrales para limitar la dispersión de la enfermedad en las regiones citrícolas del país. Ante la detección de síntomas compatibles con HLB o la presencia sospechosa de su insecto vector, Diaphorina citri, se debe notificar inmediatamente al SENASA. La comunicación puede realizarse por correo electrónico a alertahlb@senasa.gob.ar, mediante la línea gratuita 0800-999-2386 o dirigiéndose a la oficina del SENASA más cercana. El organismo ha desarrollado además el sistema móvil Alertas Senasa, destinado a comunicar sospechas de plagas mediante fotografías y georreferenciación; se recomienda verificar su disponibilidad vigente en las tiendas de aplicaciones del dispositivo.
.
.
Artículos – Noticias
2026.Jul.10 Una fuerte enfermedad de cítricos avanza en Entre Ríos: más de 80 establecimientos están bajo control
2026.Jul.09 El HLB avanza en la citricultura entrerriana: Federación bajo plan obligatorio a cargo de los productores
2026.Jun.05 Decomiso y desnaturalización de 51 plantas cítricas sin documentación sanitaria
2025.ago.08 Se estableció un nuevo plan integral de medidas para el control del HLB en plantas cítricas
2022. Nov. 29. Se extiende el alerta fitosanitario en Tucumán para el control de Diaphorina citri. La medida del Senasa prorroga hasta el 31 de marzo de 2023 el alerta y establece la denuncia obligatoria ante la detección de la plaga.
2022. Nov. 2. Injectable Oxytetracycline Registered
2022. Jun. 21. Prevención del HLB: se erradicaron plantas de Murraya paniculata en Tucumán
2022. Abr. 06. Researcher: HLB Situation in Brazil Is ‘Alarming’
2022. Mar. 04. Presencia de Diaphorina citri en una planta de traspatio en la provincia de Tucumán
2021. Oct. 27. HLB tolerant rootstocks arrive in Australia
2020. Jul. 07. UC Riverside discovers first effective treatment for citrus-destroying disease
2019. USDA ARS. Barking Up the Right Tree: Canines Detect HLB
2018. Sep. 18. Dogs enlisted to sniff out disease in citrus trees
2018. Nov. 26. Detectaron un caso positivo de HLB en una planta de naranja en Entre Ríos
2018. Nov. 05. Aplican “deep learning” para detectar HLB en cítricos
2018. Oct. 05. Combate al HLB: la ciudad inició el reemplazo de mirtos por otras especies
2018. Jul. 12. Se destruyeron más de 4000 plantas cítricas por el HLB
2018. Jul. 11. Contra el HLB: Senasa destruyó más de 4 mil plantas cítricas
2018. Jun. 18. Crían una avispa para controlar el HLB
2018. Jun. 13. Villa del Rosario y Federación: Quemaron plantas cítricas que tenían HLB
2018. Abr. 17. Advierten sobre los riesgos del HLB para la producción de cítricos en la Argentina
2018. Feb. 15. Brasil: Identifican la feromona del insecto que transmite el HLB
2018. Ene. 08. Entre Ríos: detectan el vector de una enfermedad que amenaza a los cítricos
2017. Dic. 28. Se incrementa el área de expansión del HLB: piden reforzar el monitoreo y denunciar síntomas
2017. Dic. 20. Citricultura: se detectó la peligrosa enfermedad HLB en Entre Ríos
2017. Dic. 19. El Senasa detectó insectos portadores del HLB en el norte del Río Uruguay.
2017. Oct. 04. Detectaron plantas positivas al HLB en el norte de Corrientes
2017. Sep. 26. Preocupa la llegada del HLB al NOA tras el caso en Santiago del Estero
2017. Sep. 13. Se amplía el área afectada por la enfermedad más destructiva de los cítricos
2017. Jun. 22. El Senasa detectó tres casos positivos al HLB en Formosa y Chaco
.
Videos
VIDEO DESCRIPTIVO DE SÍNTOMAS: INTA
Citrus Greening. USDAAPHIS
Detecting Asian citrus psyllid
Asian Citrus Psyllids and HLB – California Department of Food and Agriculture (CDFA)
Testing for HLB Using PCR Technology
.
Detección de HLB por perros entrenados:
Dogs can sniff out citrus greening disease
Early Detection of Citrus Greening using Dogs
Canines can detect trees infected with the bacterium that causes huanglongbing
Managing Asian Citrus Psyllid and Citrus Growth Using Particle Films
.
.
.
Bibliografía
CNAS. Information on Huanglongbing and Asian Citrus Psyllid
Achor D, Welker S, Ben-Mahmoud S, et al. (2020) Dynamics of Candidatus Liberibacter asiaticus Movement and Sieve-Pore Plugging in Citrus Sink Cells. Plant Physiology 182(2): 882‐891. doi: 10.1104/pp.19.01391
Aglave T, Stuehler D Jr, Sances FV, et al. (2026) Trunk Injection of a Curry Leaf Extract to Promote Citrus Tree Health in Huanglongbing-Endemic Regions. Plant Dis. 110(6): 2024-2028. doi: 10.1094/PDIS-10-25-2132-SC
Agostini JP (2013) INTA Montecarlo. “Huanglongbing (ex Greening) y el trabajo conjunto de las Instituciones para frenar su ingreso en Argentina”
Ahmad K, Sijam K, Hashim H, et al. (2011) Field assessment of calcium, copper and zinc ions on plant recovery and disease severity following infection of Huanglongbing (HLB) disease. African Journal of Microbiology Research 5(28): 4967-4979. doi: 10.5897/AJMR11.236
Aidoo OF, Tanga CM, Mohamed SA, et al. (2020) Detection and monitoring of ‘Candidatus’ Liberibacter spp. vectors: African citrus triozid Trioza erytreae Del Guercio (Hemiptera: Triozidae) and Asian citrus psyllid Diaphorina citri Kuwayama (Hemiptera: Liviidae) in citrus groves in East Africa. Agr Forest Entomol, 22: 401-409. doi: 10.1111/afe.12395
Ajene IJ, Khamis FM, van Asch B, et al. (2020) Distribution of Candidatus Liberibacter species in Eastern Africa, and the First Report of Candidatus Liberibacter asiaticus in Kenya. Scientific Reports 10: 3919. doi: 10.1038/s41598-020-60712-0
Albrecht U, Bowman KD (2012) Tolerance of the trifoliate citrus hybrid US-897 and related genotypes to Huanglongbing. HortScience. 47(11): 1575-1580. doi: 10.21273/HORTSCI.46.1.16
Albrecht U, McCollum G, Bowman KD (2012) Influence of rootstock variety on Huanglongbing disease development in field-grown sweet orange (Citrus sinensis [L.] Osbeck) trees. Scientia Horticulturae 138: 210-220. doi: 10.1016/j.scienta.2012.02.027
Alquézar B, Carmona L, Bennici S, et al. (2022) Cultural Management of Huanglongbing: Current Status and Ongoing Research. Phytopathology 112(1): 11-25. doi: 10.1094/PHYTO-08-21-0358-IA
Alves KS, do Carmo LHM, Del Ponte EM (2020) Spatiotemporal spread of huanglongbing in commercial citrus orchards of Minas Gerais, Brazil. Trop. plant pathol. 45: 668–679 (2020). doi: 10.1007/s40858-020-00398-x
Alves MN, Lopes SA, Raiol-Junior LL, et al. (2021) Resistance to ‘Candidatus Liberibacter asiaticus,’ the Huanglongbing Associated Bacterium, in Sexually and/or Graft-Compatible Citrus Relatives. Front. Plant Sci. 11: 617664. doi: 10.3389/fpls.2020.617664
Alves KS, Rothmann LA, Del Ponte EM (2022) Linking Climate Variables to Large-Scale Spatial Pattern and Risk of Citrus Huanglongbing: A Hierarchical Bayesian Modeling Approach. Phytopathology 112(1): 189-196. doi: 10.1094/PHYTO-05-21-0219-FI
Albrecht U, Hall DG, Bowman KD (2014) Transmission Efficiency of Candidatus Liberibacter asiaticus and Progression of Huanglongbing Disease in Graftand Psyllid-inoculated Citrus. HORTSCIENCE 49(3):367–377.
Ammar ED, Shatters RG, Hall DG (2011) Localization of Candidatus Liberibacter asiaticus, Associated with Citrus Huanglongbing Disease, in its Psyllid Vector using Fluorescence in situ Hybridization. Journal of Phytopathology. 159: 726–734. doi: 10.1111/j.1439-0434.2011.01836.x
Ammar ED, Ramos JE, Hall DG, et al. (2016) Acquisition, replication and inoculation of Candidatus Liberibacter asiaticus following various acquisition periods on huanglongbing-infected citrus by nymphs and adults of the Asian citrus psyllid. PLoS ONE. 11: e0159594. doi: 10.1371/journal.pone.0159594
Ammar ED, Achor D, Levy A (2019) Immuno-ultrastructural localization and putative multiplication sites of huanglongbing bacterium in Asian citrus psyllid Diaphorina citri. Insects. 10: 422. doi: 10.3390/insects10120422
Ammar ED, George J, Sturgeon K, et al. (2020) Asian citrus psyllid adults inoculate huanglongbing bacterium more efficiently than nymphs when this bacterium is acquired by early instar nymphs. Scientific Reports. 10: 1–10. doi: 10.1038/s41598-020-75249-5
Andrade M, Li J, Wang N (2020) Candidatus Liberibacter asiaticus: virulence traits and control strategies. Tropical Plant Pathology. doi: 10.1007/s40858-020-00341-0
Andrade MO, Pang Z, Achor DS, et al. (2020) The flagella of ‘Candidatus Liberibacter asiaticus’ and its movement in planta. Mol. Plant Pathol. 21: 109–123. doi: 10.1111/mpp.12884
Armstrong CM, Zhou L, Luo W, et al. (2022) Identification of a Chromosomal Deletion Mutation and the Dynamics of Two Major Populations of ‘Candidatus Liberibacter asiaticus’ in Its Hosts. Phytopathology 112(1): 81-88. doi: 10.1094/PHYTO-08-21-0325-FI
Arratia-Castro AA, Santos-Cervantes ME, ArceLeal AP, et al. (2016) Detection and quantification of ‘Candidatus Phytoplasma asterisʼ and ‘Candidatus Liberibacter asiaticusʼ at early and late stages of Huanglongbing disease development. Canadian Journal of Plant Pathology 38()4: 411-421. doi: 10.1080/07060661.2016.1243586
Arredondo Valdés R, Delgado Ortiz JC, Beltrán Beache M, et al. (2016) A review of techniques for detecting Huanglongbing (greening) in citrus. Canadian Journal of Microbiology 62(10): 803-811. doi: 10.1139/cjm-2016-0022
Aubert B (1987) Trioza erytreae Del Guercio and Diaphorina citri Kuwayama (Homoptera: Psylloidae), the two vectors of citrus greening disease: biological aspects and possible control strategies. Fruits 42:149–62.
Avery PB, Duren EB, Qureshi JA, et al. (2021) Field Efficacy of Cordyceps javanica, White Oil and Spinetoram for the Management of the Asian Citrus Psyllid, Diaphorina citri. Insects. 12(9): 824. doi: 10.3390/insects12090824
Badaracco A, Redes FJ, Preussler CA, Agostini JP (2017) Citrus huanglongbing in Argentina: detection and phylogenetic studies of Candidatus Liberibacter asiaticus. Australasian Plant Pathology 46(2): 171–175. doi: 10.1007/s13313-017-0473-4
Bassanezi RB, Montesino LH, Gasparoto MCG et al. (2011) Yield loss caused by huanglongbing in different sweet orange cultivars in São Paulo, Brazil. Eur J Plant Pathol. 130(4):577-586. doi: 10.1007/s10658-011-9779-1
Bassanezi RB, Lopes SA, de Miranda MP, et al. (2020) Overview of citrus huanglongbing spread and management strategies in Brazil. Tropical plant pathology (accepted). doi: 10.1007/s40858-020-00343-y
Bassanezi RB, Primiano IV, Vescove HV (2021) Effect of enhanced nutritional programs and exogenous auxin spraying on huanglongbing severity, fruit drop, yield and economic profitability of orange orchards. Crop Protection 145: 105609. doi: 10.1016/j.cropro.2021.105609
Belasque JrJ, Bassanezi RB, Yamamoto PT, et al. (2010) Lessons from Huanglongbing management in São Paulo State, Brazil. Journal of Plant Pathology 92 (2): 285-302. doi: 10.4454/jpp.v92i2.171
Bendix C, Lewis JD (2018) The enemy within: phloem-limited pathogens. Molecular Plant Pathology 19: 238–254. doi: 10.1111/mpp.12526
Blaustein RA, Lorca GL, Meyer JL, et al. (2017) Defining the Core Citrus Leaf- and Root-Associated Microbiota: Factors Associated with Community Structure and Implications for Managing Huanglongbing (Citrus Greening) Disease. Appl Environ Microbiol. 83(11): e00210-17. doi: 10.1128/AEM.00210-17
Boava LP, Cristofani-Yaly M, Machado MA (2017) Physiologic, Anatomic, and Gene Expression Changes in Citrus sunki, Poncirus trifoliata, and Their Hybrids After ‘Candidatus Liberibacter asiaticus’ Infection. Phytopathology 107(5): 590-599. doi: 10.1094/PHYTO-02-16-0077-R
Bové (2006) Huanglongbing: a destructive, newly-emerging, century-old disease of citrus. Journal of Plant Pathology 88: 7-37. doi: 10.4454/jpp.v88i1.828
Bové JM, Ayres AJ (2007) Etiology of three recent diseases of citrus: sudden death, huanglongbing and citrus variegated chlorosis. Trop Plant Pathol. 32(1): 1-17. doi: 10.1080/15216540701299326
Bové JM (2014) Huanglongbing or yellow shoot, a disease of Gondwanan origin: Will it destroy citrus worldwide?. Phytoparasitica 42: 579–583. doi: 10.1007/s12600-014-0415-4
Britt K, Gebben S, Levy A, et al. (2020) The Detection and Surveillance of Asian Citrus Psyllid (Diaphorina citri)—Associated Viruses in Florida Citrus Groves. Front. Plant Sci. 10: 1687. doi: 10.3389/fpls.2019.01687
Brlansky RH, Rogers ME (2007) Citrus Huanglongbing: Understanding the Vector-Pathogen Interaction for Disease Management. Online. APSnet Features. doi: 10.1094/APSnetFeature-2007-1207
Brlansky RH, Dewdney MM, Rogers ME (2011) Florida Citrus Pest Management Guide: Huanglongbing (Citrus Greening). University of Florida, IFAS Extension.
Brown JK, Cicero JM, Fisher TW (2016) CHAPTER 28: Psyllid-Transmitted Candidatus Liberibacter Species Infecting Citrus and Solanaceous Hosts. Vector-Mediated Transmission of Plant Pathogens. pp 399-422. doi: 10.1094/9780890545355.028
Caceres S, Zarate A, Oviedo R (2008) Primera reunión de entomólogos dedicados al estudio del insecto vector de HLB.. – Publicación de la EEA Bella Vista Serie Técnica Nº 29. – Página/s: 48 pp. – ISBN/ISSN: ISSN 1515-9299.
Canale MC, Tomaseto AF, Haddad ML, et al. (2017) Latency and Persistence of ‘Candidatus Liberibacter asiaticus’ in Its Psyllid Vector, Diaphorina citri (Hemiptera: Liviidae). Phytopathology 107(3): 264-272. doi: 10.1094/PHYTO-02-16-0088-R
Canales E, Coll Y, Hernández I, et al. (2016) ‘Candidatus Liberibacter asiaticus’, Causal Agent of Citrus Huanglongbing, Is Reduced by Treatment with Brassinosteroids. PLoS ONE 11(1): e0146223. doi: 10.1371/journal.pone.0146223
Carmo-Sousa M, Cortés MTB, Lopes JRS (2020) Understanding psyllid transmission of Candidatus Liberibacter as a basis for managing huanglongbing. Trop. plant pathol. 45: 572–585. doi: 10.1007/s40858-020-00386-1
Cen H, Weng H, Yao J, et al. (2017) Chlorophyll Fluorescence Imaging Uncovers Photosynthetic Fingerprint of Citrus Huanglongbing. Frontiers in Plant Sciences 8: 1509. doi: 10.3389/fpls.2017.01509
Cervantes-Santos JA, Villar-Luna H, Bojórquez-Orozco AM, et al. (2025) Huanglongbing as a Persistent Threat to Citriculture in Latin America. Biology (Basel). 14(4):335. doi: 10.3390/biology14040335
Cevallos-Cevallos JM, García-Torres R, Etxeberria E, et al. (2011) GC-MS Analysis of Headspace and Liquid Extracts for Metabolomic Differentiation of Citrus Huanglongbing and Zinc Deficiency in Leaves of ‘Valencia’ Sweet Orange from Commercial Groves. Phytochem. Anal. 22: 236-246. doi: 10.1002/pca.1271
Chen J, Pu X, Deng X, et al. (2009) A phytoplasma related to ‘Candidatus phytoplasma asteri’ detected in citrus showing Huanglongbing (yellow shoot disease) symptoms in Guangdong, P. R. China. Phytopathology 99(3): 236-42. doi: 10.1094/PHYTO-99-3-0236
Chen L, Liu Y, Wu F, et al. (2023) Citrus tristeza virus Promotes the Acquisition and Transmission of ‘Candidatus Liberibacter Asiaticus’ by Diaphorina citri. Viruses 15(4): 918. doi: 10.3390/v15040918
Chen X, Li Y, Li G, et al. (2025) Microwave Treatment for Citrus Huanglongbing Control: Pathogen Elimination and Metabolomic Analysis. Plants 14(17) :2712. doi: 10.3390/plants14172712
Chiyaka C, Singer BH, Halbert SE, et al. (2012) Modeling huanglongbing transmission within a citrus tree. Proc Natl Acad Sci USA 109(30): 12213-12218. doi: 10.1073/pnas.1208326109
Clark K, Franco JY, Schwizer S, et al. (2018) An effector from the Huanglongbing-associated pathogen targets citrus proteases. Nat Commun 9: 1718. doi: 10.1038/s41467-018-04140-9
Clark KJ, Pang Z, Trinh J, et al. (2020) Sec-Delivered Effector 1 (SDE1) of ‘Candidatus Liberibacter asiaticus’ Promotes Citrus Huanglongbing. Molecular Plant-Microbe Interactions 33(12): 1394-1404. doi: 10.1094/MPMI-05-20-0123-R
Coletta-Filho HD, Daugherty MP, Ferreira C et al. (2014) Temporal progression of ‘Candidatus Liberibacter asiaticus’ infection in citrus and acquisition efficiency by Diaphorina citri. Phytopathology. 104(4):416-421. doi: 10.1094/PHYTO-06-13-0157-R
Cui X, Liu K, Huang J, et al. (2021) Population diversity of «Candidatus Liberibacter asiaticus» and Diaphorina citri in Sichuan: A case study for Huanglongbing monitoring and interception. Plant Dis. doi: 10.1094/PDIS-07-21-1539-RE
da Graça JV (1991) Citrus greening disease. Annu Rev Phytopathol. 29:109-136. doi: 10.1146/annurev.py.29.090191.000545
da Graça JV, Korsten L (2004) Citrus Huanglongbing: Review, Present status and Future Strategies. In: Naqvi S.A.M.H. (eds) Diseases of Fruits and Vegetables Volume I. pp 229-245. Springer, Dordrecht. doi: 10.1007/1-4020-2606-4_4
, , , ( 2015) Huanglongbing: An overview of a complex pathosystem ravaging the world’s citrus. J Integr Plant Biol 58: 373– 387. doi: 10.1111/jipb.12437
da Silva JR, de Alvarenga FV, Boaretto RM, et al. (2020) Following the effects of micronutrient supply in HLB-infected trees: plant responses and ‘Candidatus Liberibacter asiaticus’ acquisition by the Asian citrus psyllid. Trop. plant pathol. 45: 597–610. doi: 10.1007/s40858-020-00370-9
Dai Q, Huang Y, Li Z, et al. (2025) Field-Based, Non-Destructive and Rapid Detection of Citrus Leaf Physiological and Pathological Conditions Using a Handheld Spectrometer and ASTransformer. Agriculture. 15(17): 1864. doi: 10.3390/agriculture15171864
Dala-Paula BM, Plotto A, Bai J, et al. (2019) Effect of Huanglongbing or Greening Disease on Orange Juice Quality, a Review. Frontiers Plant Science 9: 1976. doi: 10.3389/fpls.2018.01976
Dan H, Ikeda N, Fujikami M, Nakabachi A (2017) Behavior of bacteriome symbionts during transovarial transmission and development of the Asian citrus psyllid. PLoS One. 12(12): e0189779. doi: 10.1371/journal.pone.0189779
De Francesco A, Lovelace AH, Shaw D, et al. (2021) Transcriptome profiling of Candidatus Liberibacter asiaticus in citrus and psyllids. bioRxiv 2021.08.09.455679; doi: 10.1101/2021.08.09.455679
De Francesco A, Lovelace AH, Shaw D, et al. (2022) Transcriptome Profiling of ‘Candidatus Liberibacter asiaticus’ in Citrus and Psyllids. Phytopathology 112(1): 116-130. doi: 10.1094/PHYTO-08-21-0327-FI
da Graça JV, Douhan GW, Halbert SE, et al. (2016) Huanglongbing: An overview of a complex pathosystem ravaging the world’s citrus. J Integr Plant Biol. 58(4): 373-87. doi: 10.1111/jipb.12437
Deng J, Zhan Y, Sun Z, et al., (2026) ‘Candidatus Liberibacter asiaticus’ Effector SDE525 hijacks NACα to Suppress Jasmonic Acid-Mediated Immunity in Citrus. Molecular Plant Pathology. doi: 10.1111/mpp.70272
Devi EJ, Labala RK, Modak R, et al. (2020) Molecular detection of “Candidatus Liberibacter asiaticus” causing HLB in Manipur and correlation of its incidence with elevation. Trop. plant pathol. 45, 658–667. doi: 10.1007/s40858-020-00392-3
, , , (2023) A prophage-encoded effector from “Candidatus Liberibacter asiaticus” targets ASCORBATE PEROXIDASE6 in citrus to facilitate bacterial infection. Molecular Plant Pathology 24: 302– 316. doi: 10.1111/mpp.13296
Duan Y, Zhou L, Hall DG, et al. (2009) Complete genome sequence of citrus Huanglongbing Bacterium, ‘Candidatus Liberibacter asiaticus’ obtained through metagenomics. Mol. Plant Microbe Interact. 22: 1011–1020. doi: 10.1094/MPMI-22-8-1011
Duan Q, Zhou M, Zhu L, Zhu G (2013) Flagella and bacterial pathogenicity. Basic Microbiol. 53: 1–8. doi: 10.1002/jobm.201100335
Dutt M, Barthe G, Irey M, Grosser J (2015) Transgenic Citrus Expressing an Arabidopsis NPR1 Gene Exhibit Enhanced Resistance against Huanglongbing (HLB; Citrus Greening). PLoS ONE 10(9): e0137134. doi: 10.1371/journal.pone.0137134
Dutt M, Mahmoud LM, Chamusco K, et al. (2021) Utilization of somatic fusion techniques for the development of HLB tolerant breeding resources employing the Australian finger lime (Citrus australasica). PLoS ONE 16(8): e0255842. doi: 10.1371/journal.pone.0255842
EFSA (European Food Safety Authority) et al. (2019) Pest survey card on Huanglongbing and its vectors. EFSA supporting publication 2019: 16( 4): EN-1574. 23 pp. doi: 10.2903/sp.efsa.2019.EN-1574
Espinosa-Zaragoza S, Pérez-De la O NB, Aguirre-Medina JF, López-Martínez V (2021) Does the African Citrus psyllid, Trioza erytreae (Del Guercio) (Hemiptera: Triozidae), Represent a Phytosanitary Threat to the Citrus Industry in Mexico? Insects 12(5): 450. doi: 10.3390/insects12050450
Ferrarezi RS, Qureshi JA, Wright AL, et al. (2019) Citrus Production Under Screen as a Strategy to Protect Grapefruit Trees From Huanglongbing Disease. Front. Plant Sci. 10:1598. doi: 10.3389/fpls.2019.01598
Fleites LA, Jain M, Zhang S, Gabriel DW (2014) «Candidatus Liberibacter asiaticus» prophage late genes may limit host range and culturability. Applied and environmental microbiology 80(19): 6023-30. doi: 10.1128/AEM.01958-14
Flores-Sánchez JL, Mora-Aguilera G, Loeza-Kuk E, et al. (2017) Diffusion Model for Describing the Regional Spread of Huanglongbing from First-Reported Outbreaks and Basing an Area Wide Disease Management Strategy. Plant Disease 101: 1119-1127. doi: 10.1094/PDIS-04-16-0418-RE
Folimonova SY, Achor DS (2010) Early events of citrus greening (Huanglongbing) disease development at the ultrastructural level. Phytopathology 100(9): 949-58. doi: 10.1094/PHYTO-100-9-0949
Fourie P, Kirkman W, Cook G, et al. (2020) First report of ‘Candidatus Liberibacter africanus’ associated with African Greening of Citrus in Angola. Plant Disease. doi: 10.1094/PDIS-06-20-1392-PDN
Fujiwara K, Iwanami T and Fujikawa T (2018) Alterations of Candidatus Liberibacter asiaticus-Associated Microbiota Decrease Survival of Ca. L. asiaticus in in vitro Assays Front. Microbiol. 9: 3089. doi: 10.3389/fmicb.2018.03089
Galdeano DM, de Souza Pacheco I, Alves GR, et al. (2020) Friend or foe? Relationship between ‘Candidatus Liberibacter asiaticus’ and Diaphorina citri. Tropical plant pathology 45: 559–571. doi: 10.1007/s40858-020-00375-4
Gao C, Li C, Li Z, et al. (2023) Comparative transcriptome profiling of susceptible and tolerant citrus species at early and late stage of infection by «Candidatus Liberibacter asiaticus». Front Plant Sci. 14: 1191029. doi: 10.3389/fpls.2023.1191029
García J, Ramos YP, Sotelo PA, Kondo T (2016) Biology of Diaphorina citri (Hemiptera: Liviidae) under glass house conditions in Palmira, Colombia. Revista Colombiana de Entomología 42. doi: 10.25100/socolen.v42i1.6667
Gasparoto MCG, Coletta-Filho HD, Bassanezi RB, et al. (2012) Influence of temperature on infection and establishment of ‘Candidatus Liberibacter americanus’ and ‘Candidatus Liberibacter asiaticus’ in citrus plants. Plant Pathology 61: 658-664. doi: 10.1111/j.1365-3059.2011.02569.x
Ghanim M, Achor D, Ghosh S, et al. (2017) ‘Candidatus Liberibacter asiaticus’ Accumulates inside Endoplasmic Reticulum Associated Vacuoles in the Gut Cells of Diaphorina citri . Sci Rep 7: 16945. doi: 10.1038/s41598-017-16095-w
Ghosh D, Kokane S, Savita BK, et al. (2022) Huanglongbing Pandemic: Current Challenges and Emerging Management Strategies. Plants (Basel). 12(1): 160. doi: 10.3390/plants12010160
Ghosh D, Bharsakale R, Warghane A, et al. (2026) Citrus Huanglongbing: innovative strategies for sustainable management. Indian Phytopathology 79: 23–28. doi: 10.1007/s42360-026-00953-7
Gottwald TR, Aubert B, Zhao X-Y (1989) Preliminary analysis of citrus greening (Huanglongbing) epidemics in the People’s Republic of China and French Reunion Island. Phytopathology 79: 687–93. doi: 10.1094/Phyto-79-687
Gottwald TR, da Graça JV, Bassanezi RB (2007) Citrus Huanglongbing: The pathogen and its impact. Online. Plant Health Progress. doi: 10.1094/PHP-2007-0906-01-RV
Gottwald T, Parnell S, Taylor E, et al. (2008) Within-tree spatial distribution of Candidatus Liberibacter asiaticus. Proc. Int. Res. Conf. Huanglongbing, pp. 270–73. LINK
Gottwald TR (2010) Current Epidemiological Understanding of Citrus Huanglongbing. Annual Review of Phytopathology 48: 119–39. doi: 10.1146/annurev-phyto-073009-114418
Gottwald TR, Graham JH, Irey MS et al. (2012) The citrus huanglongbing epidemic in Florida: the scientific basis of regulatory policy. Phytopathology. 102(6):S4. doi: 10.1094/PHYTO.2001.91.1.30
Gottwald TR, McCollum TG (2017) Huanglongbing solutions and the need for anti-conventional thought. Journal of Citrus Pathology 4(1): https://escholarship.org/uc/item/2fp8n0g1
Gottwald T, Poole G, McCollum T, et al. (2020) Canine olfactory detection of a vectored phytobacterial pathogen, Liberibacter asiaticus, and integration with disease control. Proc Natl Acad Sci U S A. 2020;117(7):3492‐3501. doi: 10.1073/pnas.1914296117
Grafton-Cardwell EE, Daugherty MP (2016) Asian Citrus Psyllid and Huanglongbing Disease. University of California Statewide IPM Program
Graham J, Gottwald T, Setamou M (2020) Status of Huanglongbing (HLB) outbreaks in Florida, California and Texas. Tropical Plant Pathology 45:265–278. doi: 10.1007/s40858-020-00335-y
Graham JH, Bassanezi RB, Dawson WO, Dantzler R (2024) Management of Huanglongbing of Citrus: Lessons from São Paulo and Florida. Annu Rev Phytopathol. 62(1): 243-262. doi:
Granato LM, Oliveira TS, Boscariol-Camargo RL, et al. (2020) ‘Candidatus Liberibacter asiaticus’ putative effectors: in silico analysis and gene expression in citrus leaves displaying distinct huanglongbing symptoms. Trop. plant pathol. 45,646–657. doi: 10.1007/s40858-020-00382-5
Haapalainen M (2014) Biology and epidemics of Candidatus Liberibacter species, psyllid-transmitted plant-pathogenic bacteria. Annals of Applied Biology 165(2): 172-198. doi: 10.1111/aab.12149
Halbert SE, Manjunath KL (2004) Asian citrus psyllids (sternorrhyncha: psyllidae) and greening disease of citrus: a literature review and assessment of risk in florida. Florida Entomologist 87(3): 330-353. doi: 10.1653/0015-4040(2004)087[0330:ACPSPA]2.0.CO;2
Hall DG, Richardson ML, Ammar ED et al. (2013) Asian citrus psyllid, Diaphorina citri, vector of citrus huanglongbing disease. Entomol Exp Appl. 146(2):207-223. doi: 10.1111/eea.12025
Hansen AK, Trumble JT, Stouthamer R, Paine TD (2008) A New Huanglongbing Species, “Candidatus Liberibacter psyllaurous,” Found To Infect Tomato and Potato, Is Vectored by the Psyllid Bactericera cockerelli (Sulc). Applied Environmental Microbiology 74(18): 5862. doi: 10.1128/AEM.01268-08
Hao G, Stover E and Gupta G (2016) Overexpression of a Modified Plant Thionin Enhances Disease Resistance to Citrus Canker and Huanglongbing (HLB). Front. Plant Sci. 7:1078. doi: 10.3389/fpls.2016.01078
Heck ML, Larson NR, Locatelli G, et al. (2026) Grove-First: A Generalizable Framework to Evaluate Translational Solutions to Citrus Greening and Other Perennial Crop Diseases. Plant Dis. 110(6): 2155-2169. doi: 10.1094/PDIS-07-25-1379-RE
Higgins SA, Mann M, Heck M (2022) Strain Tracking of ‘Candidatus Liberibacter asiaticus’, the Citrus Greening Pathogen, by High-Resolution Microbiome Analysis of Asian Citrus Psyllids. Phytopathology 112(11): 2273-2287. doi: 10.1094/PHYTO-02-22-0067-R
Hochmaier V, Mika R, Burdyn L. Monitoreo del vector del HLB “Diaphorina citri”. INTA EEA Conconrdia. Link
Hogenhout SA, Oshima K, Ammarel-D, et al. (2008) Phytoplasmas: bacteria that manipulate plants and insects. Molecular plant pathology 9(4):403-23. doi: 10.1111/j.1364-3703.2008.00472.x
Hosseinzadeh S, Shams-Bakhsh M, Mann M, et al. (2019) Distribution and Variation of Bacterial Endosymbiont and “Candidatus Liberibacter asiaticus” Titer in the Huanglongbing Insect Vector, Diaphorina citri Kuwayama. Microb Ecol 78: 206–222. doi: 10.1007/s00248-018-1290-1
Hosseinzadeh S, Ramsey J, Mann M, et al. (2019) Color morphology of Diaphorina citri influences interactions with its bacterial endosymbionts and ‘Candidatus Liberibacter asiaticus’. PLoS ONE 14(5): e0216599. doi: 10.1371/journal.pone.0216599
Hosseinzadeh S, Heck M (2023) Variations on a theme: factors regulating interaction between Diaphorina citri and “Candidatus Liberibacter asiaticus” vector and pathogen of citrus huanglongbing. Current Opinion in Insect Science 56: 101025. doi: 10.1016/j.cois.2023.101025
Hu Y, Zhong X, Liu X, et al. (2017) Comparative transcriptome analysis unveils the tolerance mechanisms of Citrus hystrix in response to ‘Candidatus Liberibacter asiaticus’ infection. PLoS ONE 12(12): e0189229. doi: 10.1371/journal.pone.0189229
Hu J, Jiang J, Wang N (2018) Control of citrus huanglongbing via trunk injection of antimicrobial compounds and plant defense activators. Phytopathology. 108(2):186-195. doi: 10.1094/PHYTO-05-17-0175-R
Hu B, Rao MJ, Deng X, et al. (2021) Molecular signatures between citrus and Candidatus Liberibacter asiaticus. PLoS Pathog 17(12): e1010071. doi: 10.1371/journal.ppat.1010071
Hunter WB, Cooper WR, Sandoval-Mojica AF, et al. (2021) Improving Suppression of Hemipteran Vectors and Bacterial Pathogens of Citrus and Solanaceous Plants: Advances in Antisense Oligonucleotides (FANA). Front. Agron. 3: 675247. doi: 10.3389/fagro.2021.675247
Inui Kishi RN, Stach-Machado D, Singulani JdL, et al. (2018) Evaluation of cytotoxicity features of antimicrobial peptides with potential to control bacterial diseases of citrus. PLoS ONE 13(9): e0203451. doi: 10.1371/journal.pone.0203451
Irey MS, Gast T, Gottwald TR (2006) Comparison of visual assessment and polymerase chain reaction assay testing to estimate the incidence of the Huanglongbing pathogen in commercial Florida citrus. Proc. Fla. State Hortic. Soc. 119:89–93. LINK
Jain M, Cai L, Fleites LA, et al. (2019) Liberibacter crescens Is a Cultured Surrogate for Functional Genomics of Uncultured Pathogenic ‘Candidatus Liberibacter’ spp. and Is Naturally Competent for Transformation. Phytopathology 109:1811-1819. https://doi.org/10.1094/PHYTO-04-19-0129-R
Johnson EG, Wu J, Bright DB et al. (2014) Association of ‘Candidatus Liberibacter asiaticus’ root infection, but not phloem plugging, with root loss on huanglongbing-affected trees prior to appearance of foliar symptoms. Plant Pathol. 63(2): 290-298. doi: 10.1111/ppa.12109
Kelley AJPelz-Stelinski KS (2019) Maternal Contribution of Candidatus Liberibacter asiaticus to Asian Citrus Psyllid (Hemiptera: Liviidae) Nymphs Through Oviposition Site Inoculation and Transovarial Transmission. Journal of Economic Entomology 112: 2565–2568. doi: 10.1093/jee/toz197
Kenney JR, Shates T, Gebiola M, Mauck KE (2024) Hiding in Plain Sight: A Widespread Native Perennial Harbors Diverse Haplotypes of ‘Candidatus Liberibacter solanacearum’ and Its Potato Psyllid Vector. Phytopathology 114(7): 1554-1565. doi: 10.1094/PHYTO-01-24-0025-R
Keremane ML, Ramadugu C, Rodriguez E, et al. (2015) A rapid field detection system for citrus huanglongbing associated ‘Candidatus Liberibacter asiaticus’ from the psyllid vector, Diaphorina citri Kuwayama and its implications in disease management. Crop Protection 68: 41-48. doi: 10.1016/j.cropro.2014.10.026
Khadgi A, Zayed O, Sagawa CHD, et al. (2025) Mutations in the SWEET15 Sugar Transporter Gene Affect Response of Citrus to Huanglongbing Disease and Citrus Canker. Mol Plant Pathol 26: e70094. doi: 10.1111/mpp.70094
Killiny N, Jones SE (2024) A Transmission Assay of ‘Candidatus Liberibacter asiaticus’ Using Citrus Phloem Sap and Topical Feeding to Its Insect Vector, Diaphorina citri. Phytopathology 114(9): 2176-2181. doi: 10.1094/PHYTO-05-24-0171-SC
Kulshreshtha A, Ramasamy M, Irigoyen S, et al. (2026) High-efficiency genome-editing, transgene evaluation, and antimicrobial efficacy testing using Citrus medica L. hairy roots. Plant J. 125(4): e70745. doi: 10.1111/tpj.70745
Kwak Y, Sun P, Meduri VR, et al. (2021) Uncovering Symbionts Across the Psyllid Tree of Life and the Discovery of a New Liberibacter Species, “Candidatus” Liberibacter capsica. Front. Microbiol. 12: 739763. doi: 10.3389/fmicb.2021.739763
Ledford H (2017) Geneticists enlist engineered virus and CRISPR to battle citrus disease. Nature 545: 277–278. doi: 10.1038/545277a
Li W, Hartung JS, Levy L (2006) Quantitative real-time PCR for detection and identification of Candidatus Liberibacter species associated with citrus huanglongbing. Journal of Microbiological Methods 66(1): 104-115. doi: 10.1016/j.mimet.2005.10.018
Li W, Hartung JS, Levy L (2007) Evaluation of DNA amplification methods for improved detection of “Candidatus Liberibacter species” associated with citrus huanglongbing. Plant Disease 91: 51-58. doi: 10.1094/PD-91-0051
Li W, Levy L, Hartung JS (2009) Quantitative distribution of ‘Candidatus Liberibacter asiaticus’ in citrus plants with citrus huanglongbing. Phytopathology 99: 139-144. doi: 10.1094/PHYTO-99-2-0139
Li J, Pang Z, Trivedi P, et al. (2017 ) ‘Candidatus Liberibacter asiaticus’ Encodes a Functional Salicylic Acid (SA) Hydroxylase That Degrades SA to Suppress Plant Defenses. Mol Plant Microbe Interact. 30(8): 620-630. doi: 10.1094/MPMI-12-16-0257-R
Li X, Ruan H, Zhou C, et al. (2021) Controlling Citrus Huanglongbing: Green Sustainable Development Route Is the Future. Front. Plant Sci. 12: 760481. doi: 10.3389/fpls.2021.760481
Liao HL, Burns JK (2012) Gene expression in Citrus sinensis fruit tissues harvested from huanglongbing-infected trees: comparison with girdled fruit. Journal of Experimental Botany 63: 3307–3319. doi: 10.1093/jxb/ers070
Liao H, Liu F, Wang X, et al. (2025) Comparative Transcriptome Analysis of Susceptible and Resistant Rutaceae Plants to Huanglongbing. Agronomy 15(5): 1218. doi: 10.3390/agronomy15051218
Lopes SA, Bertolini E, Frare GF, et al. (2009) Graft transmission efficiencies and multiplication of ‘Candidatus Liberibacter americanus’ and ‘Ca. Liberibacter asiaticus’ in citrus plants. Phytopathology 99: 301-306. doi: 10.1094/PHYTO-99-3-0301
Lopes SA, Frare GF, Bertolini E et al. (2009) Liberibacters associated with citrus huanglongbing in Brazil: Candidatus Liberibacter asiaticus is heat tolerant, whereas Ca. Liberibacter americanus is heat sensitive. Plant Dis. 93(3): 257-262. doi: 10.1094/PDIS-93-3-0257
Lopes-da-Silva M, Martins OM, Wulff NA, et al. (2020) Survey of 16SrIX phytoplasmas associated with HLB-symptoms in weeds and leafhoppers at citrus orchards. Trop. plant pathol. 45, 680–683. doi: 10.1007/s40858-020-00345-w
Lopes SA, Cifuentes-Arenas JC (2021) Protocol for Successful Transmission of ‘Candidatus Liberibacter asiaticus’ from Citrus to Citrus Using Diaphorina citri. Phytopathology 111(12): 2367-2374. doi: 10.1094/PHYTO-02-21-0076-R
Lovelace AH, Wang C, Levy A, Ma W (2024) Transcriptomic profiling of ‘Candidatus Liberibacter asiaticus’ in different citrus tissues reveals novel insights into Huanglongbing pathogenesis. Mol Plant Microbe Interact. 38(1):56-71. doi: 10.1094/MPMI-08-24-0102-R
Louzada ES, Vazquez OE, Evan Braswell W, et al. (2016) Distribution of ‘Candidatus Liberibacter asiaticus’ Above and Below Ground in Texas Citrus. Phytopathology 106(7): 702-709. doi: 10.1094/PHYTO-01-16-0004-R
Luo W, Gottwald T, Posny D, et al. (2026) Geospatial Risk-Based Survey Model for ‘Candidatus Liberibacter asiaticus’ Detection in Residential Citrus Populations in California. Plant Dis. 110(5): 1608-1621. doi: 10.1094/PDIS-01-25-0075-RE
Ma W, Pang Z, Huang X, et al. (2022) Citrus Huanglongbing is a pathogen-triggered immune disease that can be mitigated with antioxidants and gibberellin. Nat Commun 13: 529. doi: 10.1038/s41467-022-28189-9
Makam SN, Setamou M, Alabi OJ, et al. (2023) Mitigation of Huanglongbing: Implications of a Biologically Enhanced Nutritional Program on Yield, Pathogen Localization, and Host Gene Expression Profiles. Plant Dis. 107(12): 3996-4009. doi: 10.1094/PDIS-10-22-2336-RE
Manjunath KL, Halbert SE, Ramadugu C, et al. (2008) Detection of ‘Candidatus Liberibacter asiaticus’ in Diaphorina citri and its importance in the management of citrus huanglongbing in Florida. Phytopathology 98: 387-396. doi: 10.1094/PHYTO-98-4-0387
Mann RS, Pelz-Stelinski K, Hermann SL, et al. (2011) Sexual Transmission of a Plant Pathogenic Bacterium, Candidatus Liberibacter asiaticus, between Conspecific Insect Vectors during Mating. PLoS ONE 6(12): e29197. doi: 10.1371/journal.pone.0029197
Mann M, Saha S, Cicero JM, et al. (2021) Quantification of new and archived Diaphorina citri transcriptome data using a chromosomal length D. citri genome assembly reveals the vector’s tissue-specific transcriptional response to citrus greening disease. bioRxiv 2021.09.19.460957; doi: 10.1101/2021.09.19.460957
Mann M, Saha S, Cicero JM, et al. (2022) Lessons learned about the biology and genomics of Diaphorina citri infection with «Candidatus Liberibacter asiaticus» by integrating new and archived organ-specific transcriptome data. Gigascience 11: giac035. doi: 10.1093/gigascience/giac035
Martinelli F, Uratsu SL, Albrecht U, et al. (2012) Transcriptome profiling of citrus fruit response to huanglongbing disease. PLoS One. 7(5): e38039. doi: 10.1371/journal.pone.0038039
Martinelli F, Reagan RL, Dolan D et al. (2013) Proteomic analysis highlights the role of detoxification pathways in citrus response to Huanglongbing. BMC Plant Biol. 13:167. doi: 10.1186/s12870-016-0858-5
Martini X, Malfa K, Stelinski LL, et al. (2020) Distribution, Phenology, and Overwintering Survival of Asian Citrus Psyllid (Hemiptera: Liviidae), in Urban and Grove Habitats in North Florida. Journal of Economic Entomology 113(3): 1080‐1087. doi: 10.1093/jee/toaa011
Martins EC, Teixeira DC, Coletti DAB, et al. (2025) Multiplex Quantitative PCR for the Detection of Bacteria Associated with Huanglongbing ‘Candidatus Liberibacter asiaticus,’ ‘Ca. L. americanus,’ and 16Sr IX Group Phytoplasma. Plant Dis. 109(3): 623-632. doi: 10.1094/PDIS-05-24-0970-RE
Mattos-Jr D, Kadyampakeni DM, da Silva JR, et al. (2020) Reciprocal effects of huanglongbing infection and nutritional status of citrus trees: a review. Trop. plant pathol. 45: 586–596. doi: 10.1007/s40858-020-00389-y
Menger R, Rehberg R, Trivedi P, et al. (2021) High spatial resolution fluorescence imagery for optimized pest management within a Huanglongbing-infected citrus grove. Phytopathology. doi: 10.1094/PHYTO-05-21-0211-FI
Merfa MV, Pérez-López E, Naranjo E, et al. (2019) Progress and Obstacles in Culturing ‘Candidatus Liberibacter asiaticus’, the Bacterium Associated with Huanglongbing. Phytopathology 109(7): 1092-1101. doi: 10.1094/PHYTO-02-19-0051-RVW
Merfa ESMV, Fischer ER, Silva MSE, et al. (2021) Probing the application of OmpA-derived peptides to disrupt the acquisition of ‘Candidatus Liberibacter asiaticus’ by Diaphorina citri. Phytopathology. doi: 10.1094/PHYTO-06-21-0252-FI
Milne AE, Teiken C, Deledalle F, et al. (2018) Growers’ risk perception and trust in control options for huanglongbing citrus-disease in Florida and California. Crop Protection 114: 177–186. doi: 10.1016/j.cropro.2018.08.028
Morelli M, Takayassu FH, de Andrade Pacheco C, et al. (2020) Impact of HLB on the physiological quality of citrus rootstock seeds and non-vertical ‘Candidatus Liberibacter asiaticus’ transmission. Trop. plant pathol. 45,620–625. doi: 10.1007/s40858-020-00371-8
Morgan JK, Zhou L, Li W, et al. (2012) Improved real-time PCR detection of ‘Candidatus Liberibacter asiaticus’ from citrus and psyllid hosts by targeting the intragenic tandem-repeats of its prophage genes. Mol Cell Probes 26: 90–98. doi: 10.1016/j.mcp.2011.12.001
Moschini RC, Heit GE, Conti HA, et al. (2010) Riesgo agroclimático de las áreas citrícolas de Argentina en relación a la abundancia de Diaphorina citri. Programa Nacional de prevención del Huanglongbing. SENASA. Informe enero de 2010. – Página/s: 14.
Mubeen M, Ali A, Iftikhar Y, et al. (2024) Innovative strategies for characterizing and managing huanglongbing in citrus. World J Microbiol Biotechnol. 40(11): 342. doi: 10.1007/s11274-024-04135-3
Munir S, Li Y, He P, et al. (2022) Defeating Huanglongbing Pathogen Candidatus Liberibacter asiaticus With Indigenous Citrus Endophyte Bacillus subtilis L1-21. Front. Plant Sci. 12: 789065. doi: 10.3389/fpls.2021.789065
Munyaneza JE, Sengoda VG, Buchman JL, Fisher TW (2012) Effects of Temperature on ‘Candidatus Liberibacter solanacearum’ and Zebra Chip Potato Disease Symptom Development. Plant Dis. 96: 18-23. doi: 10.1094/PDIS-03-11-0185
Nehela Y, Killiny N (2020) Revisiting the Complex Pathosystem of Huanglongbing: Deciphering the Role of Citrus Metabolites in Symptom Development. Metabolites 10(10): 409. doi: 10.3390/metabo10100409
Nian X, Wu S, Li J, et al. (2023) Spatial Distribution and Temporal Dynamics of Candidatus Liberibacter Asiaticus in Different Stages of Embryos, Nymphs and Adults of Diaphorina citri. Int J Mol Sci. 24(10): 8997. doi: 10.3390/ijms24108997
Pacheco IdS, Galdeano DM, Maluta NKP, et al. (2020) Gene silencing of Diaphorina citri candidate effectors promotes changes in feeding behaviors. Sci Rep 10: 5992. doi: 10.1038/s41598-020-62856-5
Pagliaccia D, Shi J, Pang Z, et al. (2017) A Pathogen Secreted Protein as a Detection Marker for Citrus Huanglongbing. Frontiers in Microbiology 8: 2041. doi: 10.3389/fmicb.2017.02041
Pandey SS, N C Vasconcelos F, Wang N (2020) Spatiotemporal dynamics of Candidatus Liberibacter asiaticus colonization inside citrus plant and Huanglongbing disease development. Phytopathology. doi: 10.1094/PHYTO-09-20-0407-R
Pandey SS, Hendrich C, Andrade M, Wang N (2021) Candidatus Liberibacter: From Movement, Host Responses, to Symptom Development of Citrus HLB. Phytopathology. doi: 10.1094/PHYTO-08-21-0354-FI
Pandey SS, Xu J, Achor D, et al. (2022) Microscopic and transcriptomic analyses of early events triggered by Candidatus Liberibacter asiaticus in young flushes of HLB-positive citrus trees. Phytopathology. doi: 10.1094/PHYTO-10-22-0360-R
Pang Z, Zhang L, Coaker G, et al. (2020) Citrus CsACD2 Is a Target of Candidatus Liberibacter Asiaticus in Huanglongbing Disease. Plant Physiol. 184(2): 792-805. doi: 10.1104/pp.20.00348
Park JW, Louzada ES, Evan Braswell W, et al. (2018) A new diagnostic real-time PCR method for Huanglongbing detection in citrus root tissue. Journal of General Plant Pathology 84(5): 359-367. doi: 10.1007/s10327-018-0793-4
Pazolini K, Arruda JH, Chinelato GA, et al. (2021) Temporal Progress of Huanglongbing Epidemics and the Effect of Non-commercial Inoculum Sources on Citrus Orchards in São Paulo State, Brazil. Plant Disease. doi: 10.1094/PDIS-09-19-1945-RE
Pelz-Stelinski KS, Brlansky RH, Ebert TA, Rogers ME (2010) Transmission Parameters for Candidatus Liberibacter asiaticus by Asian Citrus Psyllid (Hemiptera: Psyllidae). Journal of Economic Entomology 103: 1531–1541. doi: 10.1603/EC10123
Pelz-Stelinski KS, Killiny N (2016) Better Together: Association with “Candidatus Liberibacter Asiaticus” Increases the Reproductive Fitness of Its Insect Vector, Diaphorina citri (Hemiptera: Liviidae). Annals of the Entomological Society of America. 109: 371–376. doi: 10.1093/aesa/saw007
Peng T, Yuan Y, Huang A, et al. (2023) Interaction between the flagellum of Candidatus Liberibacter asiaticus and the vitellogenin-like protein of Diaphorina citri significantly influences CLas titer. Front. Microbiol. 14: 1119619. doi: 10.3389/fmicb.2023.1119619
Pérez-González O, Gomez-Flores R, Montesinos-Matías R, et al. (2023) Improved Diaphorina citri (Hemiptera: Liviidae) Adults Biocontrol in Citrus by Hirsutella citriformis (Hypocreales: Ophiocordycipitaceae) Gum-Enhanced Conidia Formulation. Plants (Basel) 12(6): 1409. doi: 10.3390/plants12061409
Pérez-Hedo M, Hoddle MS, Alferez F, et al. (2025) Huanglongbing (HLB) and its vectors: recent research advances and future challenges. Entomologia Generalis 45: 17 – 35. doi: 10.1127/entomologia/2024/3081
Perilla-Henao LM, Casteel CL (2016) Vector-Borne Bacterial Plant Pathogens: Interactions with Hemipteran Insects and Plants. Frontiers in Plant Science 7: 1163. doi: 10.3389/fpls.2016.01163
Pitino M, Armstrong C, Duan Y (2017) Molecular mechanisms behind the accumulation of ATP and H2O2 in citrus plants in response to ‘Candidatus Liberibacter asiaticus’ infection. Hortic Res 4: 17040. doi: 10.1038/hortres.2017.40
Raiol-Junior LL, Cifuentes-Arenas JC, Cunniffe NJ, et al. (2021) Modeling ‘Candidatus Liberibacter asiaticus’ Movement Within Citrus Plants. Phytopathology 111: 1711-1719. doi: 10.1094/PHYTO-12-20-0559-R
Ramadugu C, Keremane ML, Halbert SE et al. (2016) Long-term field evaluation reveals HLB tolerance in selected citrus relatives. Plant Dis. 100(9):1858-1869. doi: 10.1094/PDIS-03-16-0271-RE
Ramsey JS, Ammar ED, Mahoney JE, et al. (2022) Host Plant Adaptation Drives Changes in Diaphorina citri Proteome Regulation, Proteoform Expression, and Transmission of ‘Candidatus Liberibacter asiaticus’, the Citrus Greening Pathogen. Phytopathology 112(1): 101-115. doi: 10.1094/PHYTO-06-21-0275-R
Rashidi M, Lin CY, Britt K, et al. (2022) Diaphorina citri flavi-like virus localization, transmission, and association with Candidatus Liberibacter asiaticus in its psyllid host. Virology 567: 47-56. doi: 10.1016/j.virol.2021.12.009
Rehberg RA, Trivedi P, Bahureksa W, et al. (2021) Quantification of insecticide spatial distribution within individual citrus trees and efficacy through Asian citrus psyllid reductions under different application methods. Pest Manag Sci. 77(4): 1748-1756. doi: 10.1002/ps.6195
Reveglia P, Corso G, Evidente A (2024) Advances on Bioactive Metabolites with Potential for the Biocontrol of Plant Pathogenic Bacteria. Pathogens 13(11): 1000. doi: 10.3390/pathogens13111000
Reynaud B, Turpin P, Molinari FM, et al. (2022) The African citrus psyllid Trioza erytreae: An efficient vector of Candidatus Liberibacter asiaticus. Front. Plant Sci. 13: 1089762. doi: 10.3389/fpls.2022.1089762
Ribeiro C, Xu J, Hendrich C, et al. (2022) Seasonal transcriptome profiling of susceptible and tolerant citrus cultivars to citrus Huanglongbing. Phytopathology 113(2): 286-298. doi: 10.1094/PHYTO-05-22-0179-R
Riera N, Handique U, Zhang Y, et al. (2017) Characterization of Antimicrobial-Producing Beneficial Bacteria Isolated from Huanglongbing Escape Citrus Trees. Frontiers in Microbiology 8: 2415. doi: 10.3389/fmicb.2017.02415
Rios Glusberger P, Petrone JR, Muñoz-Beristain A, et al. (2023) Foliar Phosphate Applications Influence Organic Acid Composition in the Citrus Phloem and Could Reduce Huanglongbing Disease by Limiting CLas Titers. Plant Health Progress 24: 83-98. doi: 10.1094/PHP-05-22-0044-RS
Rodrigues JDB, Moreira AS, Stuchi ES, et al. (2020) Huanglongbing incidence, canopy volume, and sprouting dynamics of ‘Valencia’ sweet orange grafted onto 16 rootstocks. Trop. plant pathol. 45: 611–619. doi: 10.1007/s40858-020-00385-2
Roldán EL, Stelinski LL, Pelz-Stelinski KS (2023) Foliar Antibiotic Treatment Reduces Candidatus Liberibacter asiaticus Acquisition by the Asian Citrus Psyllid, Diaphorina citri (Hemiptera: Liviidae), but Does not Reduce Tree Infection Rate. J Econ Entomol. 116(1): 78-89. doi: 10.1093/jee/toac200
Rouse RE, Ozores-Hampton M, Roka FM, Roberts P (2017) Rehabilitation of Huanglongbing-affected citrus trees using severe pruning and enhanced Foliar nutritional treatments. HortScience 52 (7): 972-978. doi: 10.21273/HORTSCI11105-16
Salcedo-Baca D, Hinojosa R, Mora G, et al. (2010) Evaluación del impacto económico de la enfermedad de los cítricos Huanglongbing (HLB) en la cadena citrícola mexicana. Instituto Interamericano de Cooperación para la Agricultura (IICA), Mexico. 144 p.
Santos Silva M, Patt JM, de Jesus Barbosa C, et al. (2023) Asian citrus psyllid, Diaphorina citri (Hemiptera: Liviidae) responses to plant-associated volatile organic compounds: A mini-review. Crop Protection 169: 106242. doi: 10.1016/j.cropro.2023.106242
Sétamou M, Soto YL, Tachin M, et al. (2023) Report on the first detection of Asian citrus psyllid Diaphorina citri Kuwayama (Hemiptera: Liviidae) in the Republic of Benin, West Africa. Sci Rep 13: 801. doi: 10.1038/s41598-023-28030-3
Shi Q, Febres VJ, Zhang S, et al. (2018) Identification of Gene Candidates Associated with Huanglongbing Tolerance, Using ‘Candidatus Liberibacter asiaticus’ Flagellin 22 as a Proxy to Challenge Citrus. Molecular Plant-Microbe Interactions 31(2): 200-211. doi: 10.1094/MPMI-04-17-0084-R
Shi Q, Pitino M, Zhang S, et al. (2019) Temporal and spatial detection of Candidatus Liberibacter asiaticus putative effector transcripts during interaction with Huanglongbing-susceptible, −tolerant, and -resistant citrus hosts. BMC Plant Biol 19: 122. doi: 10.1186/s12870-019-1703-4
, , , et al. (2026) Selective Autophagy Receptor CsNBR1 Confers Citrus Huanglongbing Resistance by Degrading ‘Candidatus Liberibacter Asiaticus’ Virulence Effectors. Molecular Plant Pathology 27: e70310. doi: 10.1111/mpp.70310
Shibutani LJS, Primiano IV, Bassanezi RB (2026) Effect of Contact Insecticides on the Transmission of ‘Candidatus Liberibacter asiaticus’ by Diaphorina citri During Sweet Orange Shoot Development. Plant Dis. 110(6): 2363-2372. doi: 10.1094/PDIS-08-25-1758-RE
Shokrollah H, Abdullah TL, Sijam K, Abdullah SNA (2011) Potential use of selected citrus rootstocks and interstocks against HLB disease in Malaysia. Crop Protection 30: 521-525. doi: 10.1016/j.cropro.2010.09.005
Soares JM, Tanwir SE, Grosser JW, et al. (2020) Development of genetically modified citrus plants for the control of citrus canker and huanglongbing. Tropical Plant Pathology 45: 237–250. doi: 10.1007/s40858-020-00362-9
Soratto TAT, Curtolo M, Marengo S, et al. (2020) QTL and eQTL mapping associated with host response to Candidatus Liberibacter asiaticus in citrandarins. Trop. plant pathol. 45: 626–645. doi: 10.1007/s40858-020-00372-7
Stansly PA, Arevalo HA, Qureshi JA et al. (2014) Vector control and foliar nutrition to maintain economic sustainability of bearing citrus in Florida groves affected by huanglongbing. Pest Manag Sci. 70(3):415-426. doi: 10.1002/ps.3577
Stover Ed, Stange Jr. RR, McCollum TG, et al. (2013) Screening antimicrobial peptides in vitro for use in developing transgenic citrus resistant to Huanglongbing and Citrus Canker. Journal of the American Society for Horticultural Science 138(2): 142–148.
Tatineni S, Sagaram US, Gowda S, et al. (2008) In planta distribution of ‘Candidatus Liberibacter asiaticus’ as revealed by polymerase chain reaction (PCR) and real-time PCR. Phytopathology 98: 592-599. doi: 10.1094/PHYTO-98-5-0592
Taylor EL, Gottwald TR, Adkins S (2023) Structural changes in Florida citrus production, 1980-2021 and associated consequences of weather events and disease. Journal of Citrus Pathology, 10. doi: 10.5070/
Texeira DC, Ayres J, Kitajima EW, et al. (2005) First Report of a Huanglongbing-Like Disease of Citrus in Sao Paulo State, Brazil and Association of a New Liberibacter Species, “Candidatus Liberibacter americanus”, with the Disease. Plant Disease 89(1): 107-107. doi: 10.1094/PD-89-0107A
Teixeira DC, Saillard C, Couture C, et al. (2008) Distribution and quantification of Candidatus Liberibacter americanus, agent of huanglongbing disease of citrus in Sao Paulo State, Brasil, in leaves of an affected sweet orange tree as determined by PCR. Mol. Cell. Probes 22: 139–50. doi: 10.1016/j.mcp.2007.12.006
Tipu MMH, Rahman MDM, Islam MdM, et al. (2020) Citrus greening disease (HLB) on Citrus reticulata (Mandarin) caused by Candidatus Liberibacter asiaticus in Bangladesh. Physiological and Molecular Plant Pathology 112: 101558. doi: 10.1016/j.pmpp.2020.101558
Trinh J, Li T, Franco JY, et al. (2022) Citrus relatives exhibit natural variation in perception and response magnitude to microbial features. bioRxiv 2022.07.15.500235; doi: 10.1101/2022.07.15.500235
Trivedi P, Sagaram US, Kim JS et al. (2009) Quantification of viable Candidatus Liberibacter asiaticus in hosts using quantitative PCR with ethidium monoazide. Appl Environ Microbiol. 75(13):4311-4318. doi: 10.1007/s10658-009-9439-x
Vasconcelos FNC, Li J, Pang Z, et al. (2020) Census of Candidatus Liberibacter asiaticus population inside the phloem of citrus trees. Phytopathology. doi: 10.1094/PHYTO-09-20-0388-R
Vazquez JS, Killiny N (2026) Identification of Diaphorina citri Proteins with Affinity to ‘Candidatus Liberibacter asiaticus’, the Putative Pathogen of Citrus Greening Disease. Phytopathology 116(7): 1158-1172. doi: 10.1094/PHYTO-05-25-0166-R
Vosburg C, Sinn J, Orbovic V, et al. (2023) Assessment of grapefruit expressing anti-NodT antibody for huanglongbing resistance. PhytoFrontiers™ 0 0:ja. doi: 10.1094/PHYTOFR-06-23-0078-R
Wang N, Trivedi P (2013) Citrus Huanglongbing: A Newly Relevant Disease Presents Unprecedented Challenges. Phytopathology 103(7): 652-665. doi: 10.1094/PHYTO-12-12-0331-RVW
Wang N, Stelinski LL, Pelz-Stelinski KS, et al. (2017) Tale of the Huanglongbing Disease Pyramid in the Context of the Citrus Microbiome. Phytopathology 107: 4: 380-387. doi: 10.1094/PHYTO-12-16-0426-RVW
Wang N, Pierson EA, Setubal JC, et al. (2017) The Candidatus Liberibacter-Host Interface: Insights into Pathogenesis Mechanisms and Disease Control. Annual Review of Phytopathology 55: 451–482. doi: 10.1146/annurev-phyto-080516-035513
Wang N (2019) The Citrus Huanglongbing Crisis and Potential Solutions. Mol Plant. 12(5):607-609. doi: 10.1016/j.molp.2019.03.008
Wang Y, Halbert S, Mohamed S, et al. (2021) Mitochondrial genomes reveal diverse lineages of Diaphorina citri Kuwayama (Hemiptera: Sternorrhyncha: Psyllidae) in Kenya and La Réunion. Biol Invasions 23: 3109–3117. doi: 10.1007/s10530-021-02560-1
Wang Y, Zhou L, Yu X, et al. (2016) Transcriptome Profiling of Huanglongbing (HLB) Tolerant and Susceptible Citrus Plants Reveals the Role of Basal Resistance in HLB Tolerance. Front Plant Sci. 7: 933. doi: 10.3389/fpls.2016.00933
Wang N (2020) A perspective of citrus Huanglongbing in the context of the Mediterranean Basin. J Plant Pathol 102: 635–640. doi: 10.1007/s42161-020-00555-w
Wang Y, Ji H, Qiu A, et al. (2026) Integrated Analysis of Citrus Molecular Responses to CLas: Towards Mechanistic Understanding. Horticulturae 12(5): 629. doi: 10.3390/horticulturae12050629
Wheatley M, Duan YP, Yang Y (2021) Highly sensitive and rapid detection of citrus Huanglongbing pathogen (Candidatus Liberibacter asiaticus) using Cas12a-based methods. Phytopathology. doi: 10.1094/PHYTO-09-20-0443-R
Willink E, Argañaraz M, Lizondo M, et al. (2006) Presencia de Diaphorina citri (Hemiptera: Psyllidae) en el Noroeste Argentino (NOA). – Página/s: 2. – ISBN/ISSN: ISSN 0373-5680.
Wu J, Alférez FM, Johnson EG, Graham JH (2018) Up-regulation of PR1 and less disruption of hormone and sucrose metabolism in roots is associated with lower susceptibility to ‘Candidatus Liberibacter asiaticus’. Plant Pathology (Online). doi: 10.1111/ppa.12838
Wu F, Huang M, Fox EGP, et al. (2021) Preliminary Report on the Acquisition, Persistence, and Potential Transmission of Citrus tristeza virus by Diaphorina citri. Insects 12(8): 735. doi: 10.3390/insects12080735
Wulff NA, Daniel B, Sassi RS, et al. (2020) Incidence of Diaphorina citri Carrying Candidatus Liberibacter asiaticus in Brazil’s Citrus Belt. Insects 11(10): 672. doi: 10.3390/insects11100672
Xi MY, Deyett E, Ginnan N, et al. (2022) Geographic Location, Management Strategy, and Huanglongbing Disease Affect Arbuscular Mycorrhizal Fungal Communities Across U.S. Citrus Orchards. Phytobiomes Journal 6: 342-353. doi: 10.1094/PBIOMES-03-22-0014-R
Xu Q, Cai JR, Zhang W, et al. (2022) Detection of citrus Huanglongbing (HLB) based on the HLB-induced leaf starch accumulation using a home-made computer vision system. Biosystems Engineering 218: 163-174. doi: 10.1016/j.biosystemseng.2022.04.018
Yamamoto PT, Felippe MR, Garbim LF, et al. (2006) Diaphorina citri (Hemiptera: Psyllidae): vector of the bacterium Candidatus Liberibacter americanus. Proc. Huanglongbing Green. Int. Workshop, p. 96. Ribeirao Preto, Braz. Araraquara, Braz: Fundecitrus
Yan Q, Sreedharan A, Wei S, et al. (2013) Global gene expression changes in Candidatus Liberibacter asiaticus during the transmission in distinct hosts between plant and insect. Mol. Plant Pathol. 14: 391–404. doi: 10.1111/mpp.12015
Yang C, Ancona V (2022) An Overview of the Mechanisms Against “Candidatus Liberibacter asiaticus”: Virulence Targets, Citrus Defenses, and Microbiome.Front. Microbiol. 13: 850588. doi: 10.3389/fmicb.2022.850588
Yuan X, Chen C, Bassanezi RB, et al. (2021) Region-Wide Comprehensive Implementation of Roguing Infected Trees, Tree Replacement, and Insecticide Applications Successfully Controls Citrus Huanglongbing. Phytopathology: PHYTO09200436R. doi: 10.1094/PHYTO-09-20-0436-R
Younas M, Zheng Z, Chen H, et al. (2025) A century-old fight against Huanglongbing with antimicrobial peptides opening the door to citrus health. Horticultural Plant Journal. doi: 10.1016/j.hpj.2025.05.021
Younas M, Zheng Z, Atiq M, et al. (2025) Insights into the Huanglongbing pandemic focusing on transmission biology, virulence factors and multifaceted management strategies. Pest Manag Sci 81: 6076-6094. doi: 10.1002/ps.70073
Zhang M, Powell CA, Guo Y et al. (2011) A graft-based chemotherapy method for screening effective molecules and rescuing huanglongbing-affected citrus plants. Phytopathology. 101(6):S205. doi: 10.1094/PHYTO-09-11-0265
Zhang S, Lu Y, He J, et al. (2025) A Candidatus Liberibacter asiaticus effector, CLIBASIA_00185 controls sugar metabolism, phenylpropanoid biosynthesis, and endocytosis pathway in Citrus sinensis. BMC Genomics 26(1): 717. doi: 10.1186/s12864-025-11922-1
Zhao H, Sun R, Albrecht U, et al. (2013) Small RNA profiling reveals phosphorus deficiency as a contributing factor in symptom expression for citrus huanglongbing disease. Mol Plant. 6(2):301-310. doi: 10.1093/mp/sst002
Zhao P, Yang H, Sun Y, et al. (2025) Targeted MYC2 stabilization confers citrus Huanglongbing resistance. Science. 388(6743): 191-198. doi: 10.1126/science.adq7203
Zhou C (2020) The status of citrus Huanglongbing in China. Trop. plant pathol. 45: 279–284. doi: 10.1007/s40858-020-00363-8
Zhou Y, Tang Y, Hu C, et al. (2021) Soil applied Ca, Mg and B altered phyllosphere and rhizosphere bacterial microbiome and reduced huanglongbing incidence in gannan navel orange. Sci. Total Environ. 791: 148046. doi: 10.1016/j.scitotenv.2021.148046
, , , Prophage region and short tandem repeats of “Candidatus Liberibacter asiaticus” reveal significant population structure in China. Plant Pathology 00: 1– 11. doi: 10.1111/ppa.13332
Zheng L, Xu Q, Gong G, et al. (2023) Nicotiana tabacum as a dead-end trap for adult Diaphorina citri: A potential biological tactic for protecting citrus orchards. Front. Plant Sci. 13: 1081663. doi: 10.3389/fpls.2022.1081663
Zou H, Gowda S, Zhou L, et al. (2012) The destructive citrus pathogen, ‘Candidatus Liberibacter asiaticus’ encodes a functional Flagellin characteristic of a pathogen-associated molecular pattern. PLoS One 7: e46447. doi: 10.1371/journal.pone.0046447